Encore des observations n’allant pas dans le sens de la théorie!

par Dr. Jean N., Professeur en Faculté des Sciences

En octobre 2017 un article signé Carl Brehmer[1] et traitant de la théorie de l’effet de serre radiatif était publié sur le site web de l’association anglaise Principia Scientific International[2]. Dans cet article, l’auteur utilisait des données fournies par les stations météorologiques SURFRAD et démontrait que la théorie de l’effet de serre ne pouvait pas expliquer les observations. Si l’auteur a raison, il s’agit encore d’un sérieux problème pour la théorie. Dans le présent article nous allons suivre les pas de Carl Brehmer mais nous allons faire nos propres calculs en employant une autre méthodologie. Arriverons-nous aux mêmes conclusions?

Continuer la lecture de Encore des observations n’allant pas dans le sens de la théorie! →

Pas de réchauffement pour les zones éloignées des océans

par Dr. Jean N., professeur d’Université en Faculté des Sciences.

La théorie radiative de l’effet de serre prédit que la température de la basse atmosphère augmente lorsque le taux de CO2 croît. Si l’on prend par exemple une très vaste région, comme la Chine centrale ou le Midwest américain, qui couvrent tous deux des centaines de milliers de km2, on devrait donc observer un accroissement des températures moyennes de la basse atmosphère en fonction du temps. Effectivement, dans ces régions, et comme pour tout l’hémisphère Nord, le taux de CO2 n’a fait qu’augmenter depuis le début des mesures par spectrométrie infra-rouge en 1959. Cependant, une étude récente vient de montrer que la température moyenne n’aurait pas augmenté dans ces vastes régions, et ce malgré l’augmentation du taux de CO2 atmosphérique. L’étude en question a été publiée dans Energy & Environment en 2018 par deux chercheurs danois de la Danish Technical University, Frank Lansner et Jens Pedersen[1]. Il faut rester prudent, mais si cette étude est confirmée, il s’agirait d’un sérieux problème pour la théorie radiative de l’effet de serre.

Continuer la lecture de Pas de réchauffement pour les zones éloignées des océans →

L’augmentation récente du taux de CO2 atmosphérique est-elle exceptionnelle ?


par Alain Préat, Professeur émérite de l’Université Libre de Bruxelles

En cas de citation prière de mentionner  Alain Préat  « L’augmentation récente du taux de    CO2 atmosphérique est-elle exceptionnelle? http://www.science-climat-energie.be/2019/01/10/laugmentation-recente-du-taux-de-co2-atmospherique-est-elle-exceptionnelle/

1. Des évidences ?

 Une des problématiques majeures aujourd’hui concerne la cinétique de la concentration du CO2 atmosphérique. Cette problématique aveugle le débat, tant parmi les scientifiques que les non scientifiques (politiques, médias, tout un chacun…). Le raisonnement est simple, semble même imparable, car que n’entend-on pas dire : le taux de CO2 actuel évolue comme jamais ce ne fut le cas dans l’histoire de la Terre. Cette vérité simpliste semble d’autant bien établie qu’elle n’a jamais été infirmée et qu’à l’échelle de temps de l’année, le  taux de CO2 augmente effectivement comme le montrent bien les mesures directes effectuées systématiquement depuis 1880.  Il s’agirait donc d’une évidence. L’est-elle vraiment ? Continuer la lecture de L’augmentation récente du taux de CO2 atmosphérique est-elle exceptionnelle ? →

Etendue de la glace arctique : actualisation décembre 2018

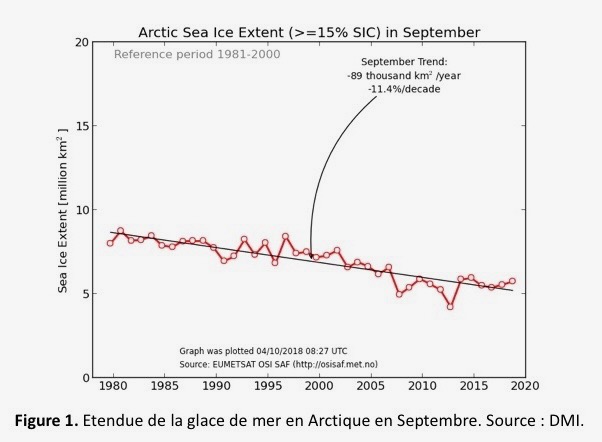
Le DMI (Danish Meteorological Institute) publie régulièrement l’évolution temporelle,  mois par mois, de l’étendue de la glace de l’Arctique. Le site SCE met en ligne les ‘updates’ concernant cette évolution depuis l’update d’octobre 2018 .

L’étendue de la glace arctique de décembre 2018 est plus grande que les mois de décembre 2015/2016/2017.

L’année 2018 est une nouvelle année avec un faible degré de fonte de la couche de glace , comme pour les années précédentes (Polar Portal).

Egalement se reporter à Connolly et al. 2017 pour l’évolution à plus long terme (depuis 1900).

‘Température moyenne globale’ pour décembre 2018

Le site SCE met chaque mois la mise au point ou ‘update’ de la ‘température moyenne globale’ établie officiellement à partir des données satellitaires UAH. Les données de base et des informations complémentaires sont accessibles sur le site de Roy W. Spencer.

L’année 2018 a été la  6ème plus chaude (température moyenne globale :  +0,23°C) depuis 1979. L’évolution de la température reste de +0,13°C/décade de janvier 1979 à décembre 2018, soit 0,01°C/an.

L’écart de température pour décembre 2018 est de 0,25°C, soit un écart un peu moins élevé que celui de novembre 2018 (-0,03°C). La courbe est descendante par rapport aux dernières années (cf. graphique).


Une autre hypothèse pour expliquer la hausse des températures

par Prof. Dr. Paul Berth

Comme tout le monde le sait, pour expliquer la légère hausse des températures de l’atmosphère observée au 20e siècle, le GIEC invoque un seul responsable : le taux de CO2 atmosphérique, et donc l’activité humaine. Les médias, bien entendu, suivent le GIEC et le monde entier diabolise le CO2. Cependant, n’existe-t-il pas d’autres hypothèses? Les lecteurs attentifs de ce site (SCE) savent que l’hypothèse du GIEC est mise à mal par toute une série d’observations (voir par exemple ici, ici et ici) et que certains problèmes théoriques existent dans la théorie même de l’effet de serre (voir ici et ici). Quelle est donc l’explication pour le réchauffement si ce n’est pas le taux de CO2? Bien qu’il y ait probablement des causes multiples, nous allons voir qu’une équipe de chercheurs du CERN propose une hypothèse alternative en se basant sur les résultats du projet CLOUD. Une vidéo récente (octobre 2018) présentant les résultats de cette expérience sera d’ailleurs présentée en fin d’article. Avant de regarder cette vidéo, faisons d’abord le point.

1. La grande importance des nuages et aérosols

Les nuages sont des masses visibles constituées d’une grande quantité de gouttelettes d’eau ou de cristaux de glace en suspension dans l’atmosphère au-dessus de la surface d’une planète. Ils sont souvent associés à de microscopiques particules minérales ou organiques responsables de leur formation (voir point 2 ci-dessous). Les nuages font partie des aérosols, c’est-à-dire des particules solides ou liquides en suspension dans une atmosphère.

Les nuages et aérosols ont une importance capitale pour le climat de notre Terre. Pour s’en rendre compte il suffit de prendre un bain de soleil : lorsqu’un nuage arrive, la personne en train de bronzer se rhabille, car il fait subitement beaucoup plus froid. La couverture nuageuse et les aérosols jouent un rôle majeur sur la quantité de rayons solaires arrivant au sol et donc sur la température moyenne de la basse atmosphère. Les nuages sont en effet en grande partie responsables de ce que l’on appelle l’albédo de la Terre.

L’albédo de la Terre est la quantité de rayonnement solaire directement réfléchie par la Terre vers l’espace. Les rayons réfléchis vers l’espace ne sont pas capables de réchauffer la planète. L’albédo est un chiffre sans dimensions allant de 0 (le corps noir parfait qui absorbe tous les rayonnements) à 1 (un corps parfaitement réfléchissant et n’absorbant rien). L’albédo moyen de la Terre est de 0.3[1]. Ceci veut dire que 30% des radiations solaires sont réfléchies vers l’espace sans être absorbées. Les principaux responsables de cet albédo sont les surfaces réfléchissantes comme la glace, l’eau, les nuages et les aérosols. Concernant les aérosols, au plus il y en a dans l’atmosphère, au moins il y aura de rayonnements solaires réchauffant le sol, entraînant un refroidissement des basses couches atmosphériques. Deux observations démontrent que les aérosols influencent la température de la basse atmosphère :

(1) Lors de l’occupation du Koweït par l’Irak de nombreux puits de pétrole furent incendiés ce qui produisit d’énormes nuages de particules de suie dans la région. Ces aérosols ont perduré pendant des mois. Un étude a ensuite démontré que la température sous les aérosols avait chuté de 10°C par rapport aux zones de ciel dégagé[2]. L’effet des aérosols est ici clairement démontré.

(2) Un autre exemple est l’éruption du volcan Tambora qui a eu lieu en Indonésie en avril 1815. Cette éruption est considérée comme l’éruption la plus violente des temps historiques et est responsable de “l’année sans été” de 1816. En effet, la quantité de particules émises dans l’atmosphère était tellement importante qu’un refroidissement climatique général a été constaté : en 1816, les moyennes des températures dans l’hémisphère nord descendirent de 0,5°C à plus de 1°C[3].

En plus de leur effet réfléchissant (pour les radiations venant directement du soleil) il est évident que les nuages retiennent également la chaleur en provenance du sol. Il y a moins de pertes de chaleur par convection lorsqu’il y a des nuages. C’est pour cela qu’il fait plus chaud la nuit lorsque le ciel est nuageux que lorsque le ciel est dégagé. Nous voyons donc que les nuages ont un double rôle.

2. Les nuages se forment en présence de noyaux de condensation

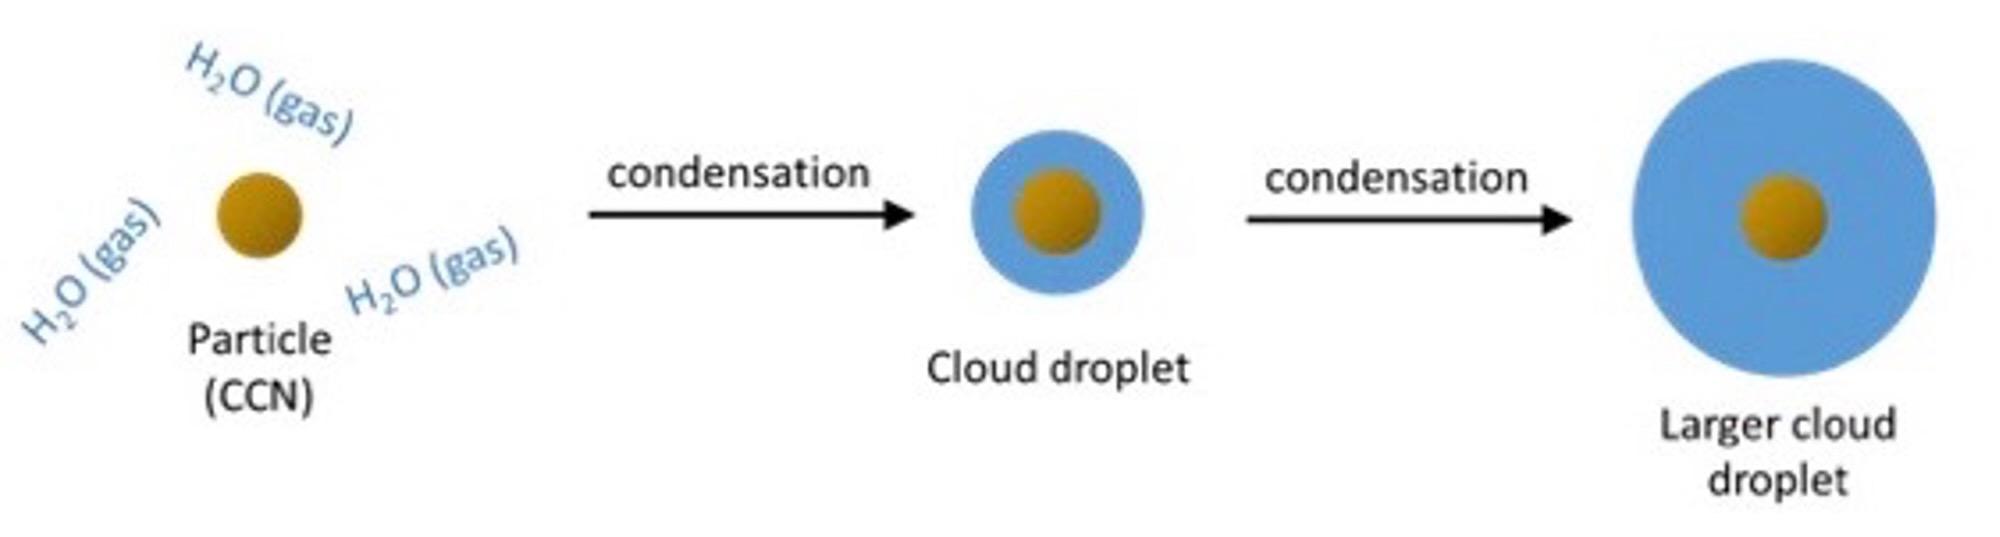
Pour qu’un nuage se forme il faut des noyaux de condensation. Les anglophones parlent de CCN, pour Cloud Condensation Nuclei. Ces noyaux de condensation sont de petites particules solides de composition très variable, de diamètre voisin de 0,2 microns. Lorsque l’air est chargé d’humidité, les molécules d’eau se rassemblent sur les CCN et finissent par former des gouttelettes d’eau en suspension dans l’air et donc un nuage (Figure 1). Sans ces petites particules solides, les nuages ne se formeraient pas aussi facilement. La quantité de particules solides dans l’atmosphère est donc un facteur très important qui détermine la quantité de nuages et donc l’albédo de la Terre, et finalement le climat et son évolution.

Figure 1. Formation de nuages en présence de noyaux de condensation (CCN : Cloud Condensation Nuclei).

3. Les noyaux de condensation de l’atmosphère peuvent se former en présence de radiations cosmiques et de molécules d’origine biologique

Nous allons voir maintenant que les radiations cosmiques sont d’une grande importance dans le processus de formation des noyaux de nucléation. Que sont les radiations cosmiques? Il s’agit essentiellement de rayonnements de haute énergie qui proviennent pour la plupart de l’extérieur du système solaire, par exemple de galaxies lointaines[4]. Ce rayonnement comporte pour sa partie chargée principalement des protons (88%), des noyaux d’hélium (9%), le reste étant constitué d’électrons et de différents nucléons ainsi que de quantités infimes d’antimatière légère (antiprotons et positrons). La partie neutre du rayonnement est quant à elle constituée de rayons gamma ainsi que de neutrinos. Sur Terre, il est impossible d’y échapper, et nous sommes chaque jours traversés de part-en-part par ces particules de très haute énergie. En impactant l’atmosphère terrestre, les rayons cosmiques produisent des pluies de particules secondaires qui peuvent également atteindre la surface de la Terre.

Par quels processus ces radiations cosmiques peuvent-elles donc produire des noyaux de condensation pour la vapeur d’eau? Simplement, en présence de molécules organiques volatiles d’origine biologique (en anglais on parle de VOC pour Volatile Organic Compounds). C’est ce que nous démontre une publication récente de Jasper Kirkby publiée dans Nature[5]. Les VOC seraient donc d’une importance capitale car elles produisent des particules pouvant former des nuages. Ces résultats ont été obtenus au CERN lors d’une série d’expériences du projet CLOUD (Cosmics Leaving OUtdoor Droplets), entre Octobre 2012 et Novembre 2013.

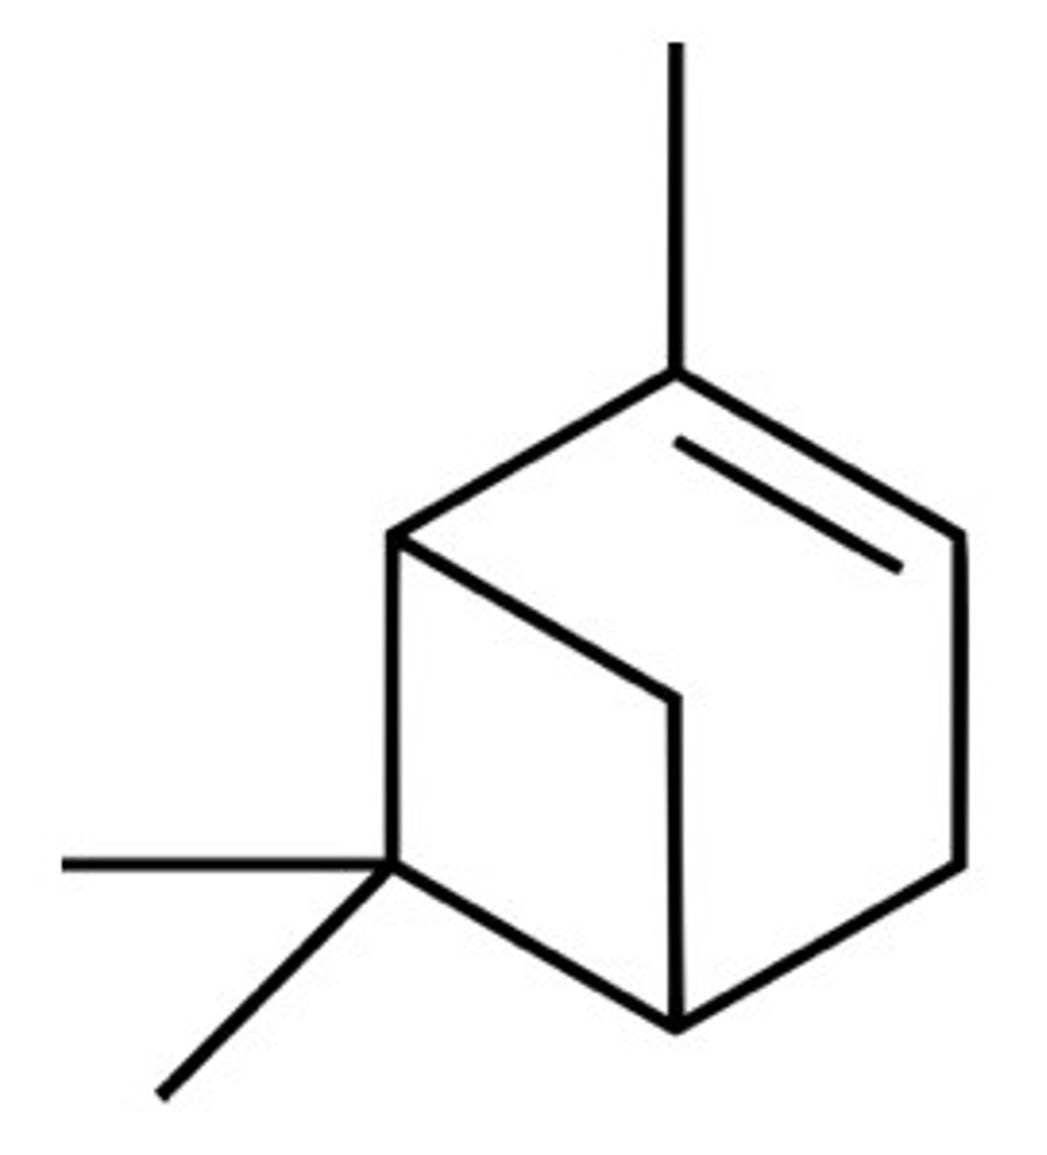
De nombreuses sources naturelles de VOC existent et la végétation en est l’une des principales sources. Les VOCs sont essentiellement de l’isoprène (C5H8) et ses formes polymères : des monoterpènes (C10H16), sesquiterpènes (C15H24) et diterpènes (C20H32). Dans l’expérience du CERN citée ci-dessus c’est de l’α-pinène (Figure 2) qui a été utilisé par les chercheurs car c’est le monoterpène d’origine biologique le plus abondant dans l’atmosphère, dépassant souvent 50 pptv (1 pptv se lit  en anglais “1 part-per-trillion by volume” et signifie 1 molécule pour 1 000 000 000 000 de molécules, soit 10–12)[6]. Pour l’expérience du CERN, l’α-pinène a été placé dans des cuves en acier de 3 m de diamètre et a d’abord été oxydé par exposition à de l’ozone mais aussi par exposition à des radicaux hydroxyles (OH•) produits par photolyse de l’ozone. Cette oxydation aurait également lieu dans la nature et produit toute une série de molécules fortement oxygénées (les HOM, pour “highly oxygenated molecules”) qui furent identifiées et dosées par l’équipe de chercheurs. Nous n’entrerons pas dans ces détails ici.

Figure 2. L’α-pinène (C10H16), un monoterpène bicyclique produit par de nombreuses plantes.

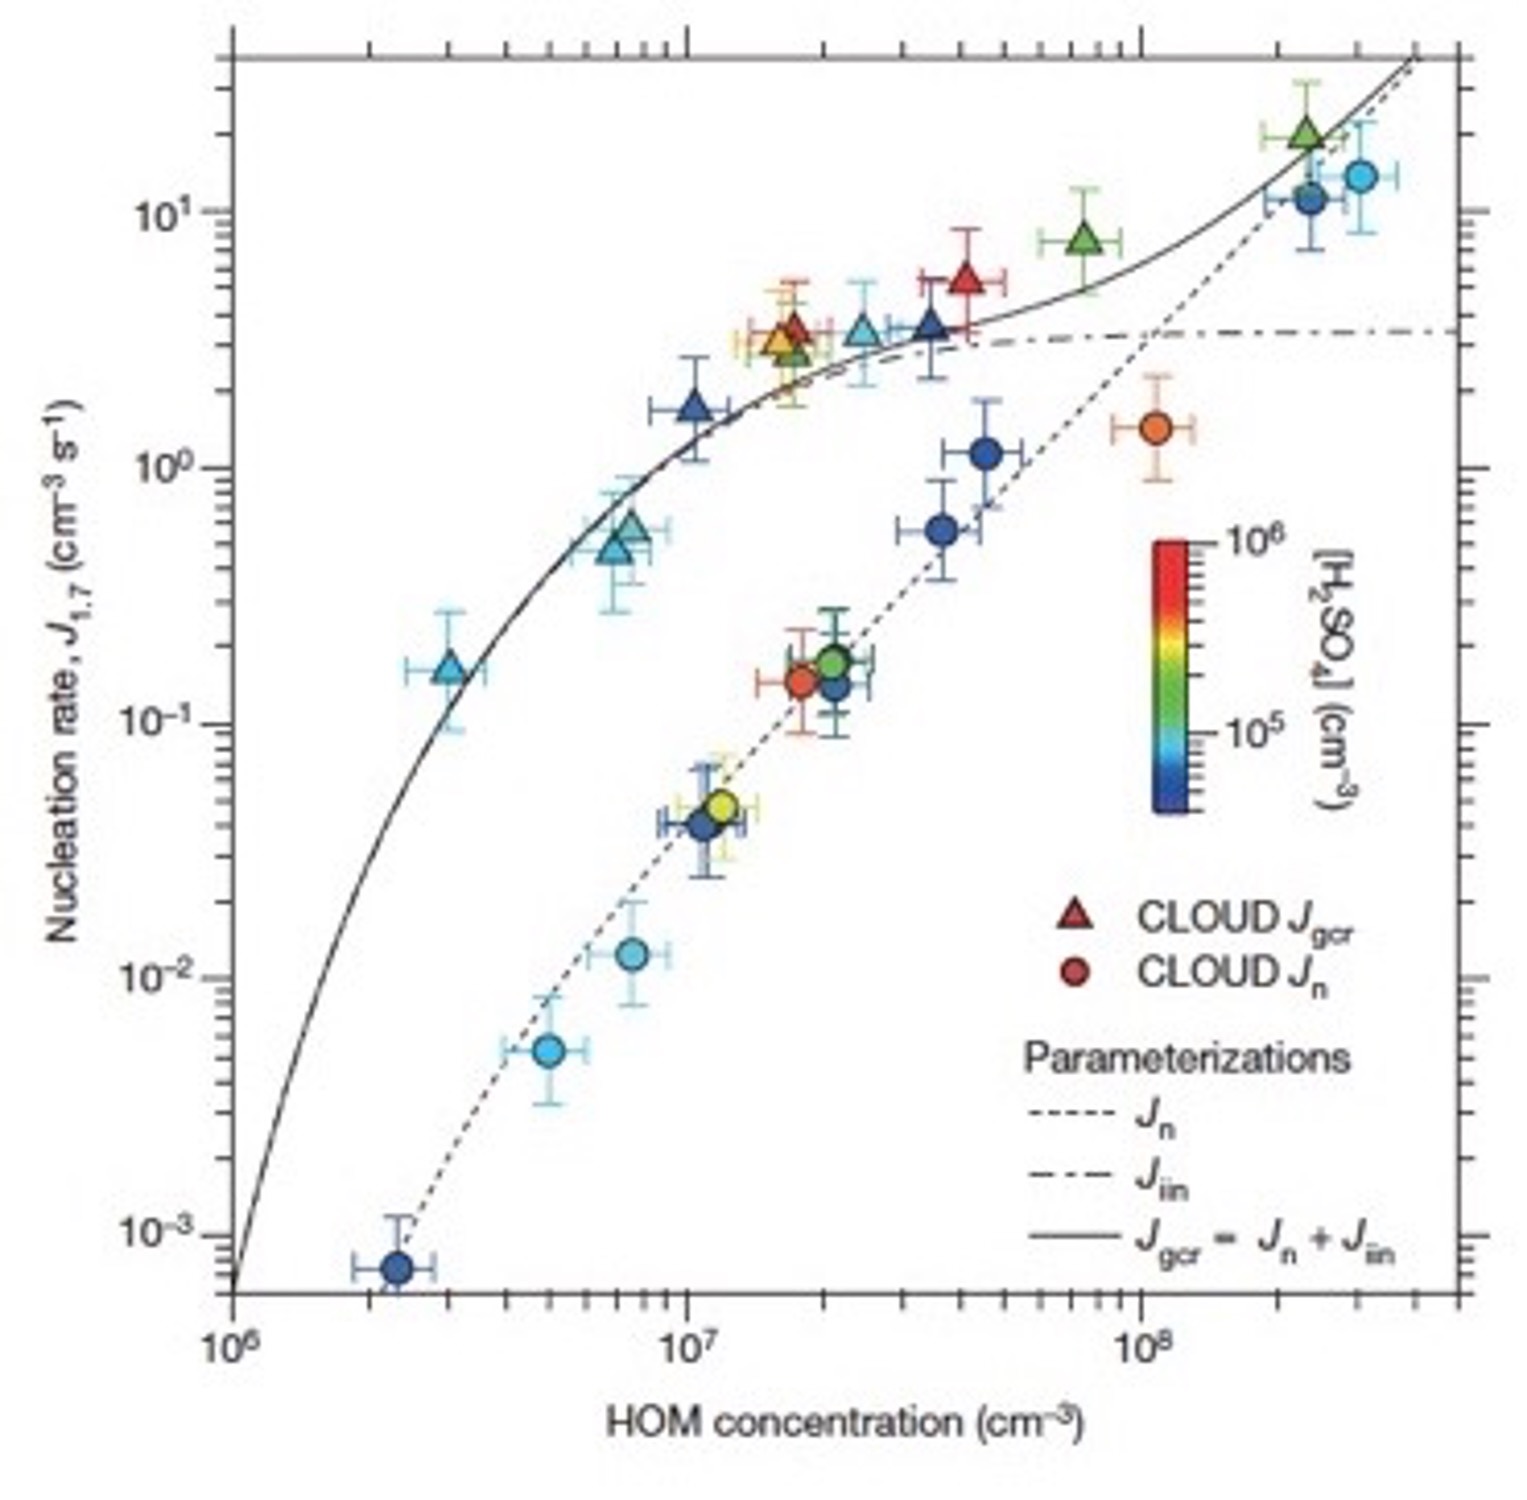
Le point important est qu’après avoir obtenu ces HOM issus de l’α-pinène, l’équipe de Kirkby irradia la cuve avec des rayonnements semblables aux radiations cosmiques. Ils détectèrent alors une formation de particules solides capables d’agir comme noyaux de condensation pouvant former des nuages. Ils virent que les rayons cosmiques augmentaient la vitesse de nucléation de un à deux ordres de grandeur par rapport aux contrôles ou la nucléation se produisait en l’absence de radiations cosmiques (Figure 3). Les chercheurs montrèrent également que l’acide sulfurique atmosphérique, pouvant être produit par les  activités humaines lors par exemple de la combustion du charbon, peut influencer le phénomène et réduire le nombre de noyaux de condensation, et donc in fine la quantité de nuages. L’équipe de Kirkby a donc mis le doigt sur un mécanisme par lequel la végétation peut influencer le climat de la terre, et ce sans faire intervenir le CO2!

Figure 3. Vitesse de nucléation des particules biologiques en fonction de la concentration de molécules hautement oxygénées (HOMs, highly oxygenated molecules) provenant de la réaction de l’a-pinène avec l’ozone (O3) et les radicaux hydroxyles (OH•) de l’atmosphère. La courbe avec les triangles correspond à la présence de radiations cosmiques, la courbe avec les cercles sont les contrôles sans radiations cosmiques. Les couleurs indiquent la concentration en H2SO4. Source : Kirkby et al. 2016.

4. Conclusion

En conclusion, la végétation est donc capable de produire des particules atmosphériques pouvant mener à la formation de nuages en présence de rayons cosmiques. Ces nuages régulent ensuite le climat, comme chacun peut le constater en prenant un bain de soleil. Dans la vidéo explicative du CERN donnée ci-dessous, il est expliqué que les nuages étaient probablement plus abondants avant l’ère industrielle (ca. 1850) par rapport à aujourd’hui, et ce en raison d’une moindre présence d’acide sulfurique atmosphérique. Il en résulte que la température de l’atmosphère était plus basse avant l’ère industrielle, et ceci est bien visible sur les séries thermométriques comme par exemple la série HadCrut4 : la différence est d’environ 0.7–0.8°C entre 1880 et 2018 (voir ici).

Le CERN vient donc de proposer un mécanisme capable de refroidir ou de réchauffer les basses couches atmosphériques et dans lequel le CO2 n’a plus aucun rôle!! Il existe bien entendu une corrélation entre niveau d’activité industrielle et taux de CO2 atmosphérique, mais ce n’est pas le CO2 qui provoque le réchauffement dans le mécanisme proposé. C’est simplement un peu moins de nuages qui provoque le réchauffement.

Notons que l’équipe de Svensmark (2017) propose d’autres mécanismes basés sur les rayons cosmiques, et tout comme dans le mécanisme proposé par Kirkby, le CO2 ne joue aucun rôle. Les dernières recherches de Svensmark sont publiées dans la revue Nature Communications.

Nous voyons donc que le GIEC devrait sérieusement revoir ses conclusions… Mais va t’il tenir compte de ces recherches dans son prochain rapport? Nous pouvons parier que ces recherches seront oubliées… Décidemment comme nous aimons à la répéter dans SCE, beaucoup de choses sont encore à découvrir en climatologie, et prétendre que la ‘Science est dite’ semble bien hasardeux et présomptueux. Regardons maintenant la vidéo ci-dessous :

Vidéo explicative du CERN.

Références

[1] Goode, P. R.; et al. (2001). “Earthshine Observations of the Earth’s Reflectance”. Geophysical Research Letters. 28 (9): 1671–1674.

[2] Cahalan RF (1991) The Kuwait oil fires as seen by Landsat. Journal of Geophysical Research: Atmospheres. 97 (D13): 14565.

Aldhous P (1991) Oil-well climate catastrophe. Nature, 349 (6305): 96.

[3] Richard B. Stothers (1984). “The Great Tambora Eruption in 1815 and Its Aftermath”. Science. 224 (4654): 1191–1198.

[4] Ackermann et al. (2013) Detection of the Characteristic Pion-Decay Signature in Supernova Remnants. Science. 339 (6424): 807–811.

[5] Kirkby et al. (2016) Ion-induced nucleation of pure biogenic particles. Nature 533:521-526.

[6] Guenther, A. B. et al. The Model of Emissions of Gases and Aerosols from Nature version 2.1 (MEGAN2.1): an extended and updated framework for modeling biogenic emissions. Geosci. Model Dev. 5, 1471–1492 (2012).

Une question des plus simples en géologie : la couleur des roches ?

par Alain Préat, Professeur émérite de l’Université Libre de Bruxelles 

En cas de citation prière de mentionner  Alain Préat  « Une question des plus simples en géologie : la couleur des roches? » http://www.science-climat-energie.be/wp-admin/post.php?post=4127&action=edit

1. Introduction

Cet article est le résultat d’une recherche multi-disciplinaire entre géologues et biologistes. Une synthèse de cette recherche vient d’être publiée en décembre 2018 sur le site de Geologica Belgica. Un article déjà publié dans SCE peut également être consulté.

Contrairement à ce que l’on peut penser, une question simple nécessite parfois des années de recherches avec des équipes diverses et des moyens sophistiqués. La question simple concerne ici la géologie et plus particulièrement la couleur des roches sédimentaires.

Continuer la lecture de Une question des plus simples en géologie : la couleur des roches ? →

La biomasse globale : de larges incertitudes, également sur le cycle du carbone!

par Prof. Dr. Paul Berth

Dans un article récent de juin 2018[1], le biologiste Yinon Bar-On et ses collaborateurs ont estimé la biomasse totale de la biosphère actuelle (Bar-On et al. 2018). Pour cela, ils ont simplement estimé les nombres de bactéries, protozoaires, plantes et animaux dans tous les écosystèmes de la planète. En connaissant le poids moyen de chaque organisme, les auteurs ont ensuite réalisé des sommes. Ils arrivent au chiffre final de 550 gigatonnes (Gt) de carbone. Ce chiffre est-il élevé ? Avec quoi peut-on le comparer? Est-il précis ? Quels sont les organismes les plus importants dans la biosphère ? Quelles sont les conséquences pour le cycle du carbone, et donc pour la concentration de CO2 atmosphérique ? Voici toute une série de questions que l’on doit se poser. Nous allons voir que les résultats de Yinon Bar-On sont assez étonnants et qu’ils induisent des conséquences majeures pour le cycle du carbone dans la biosphère.

1. Des résultats étonnants

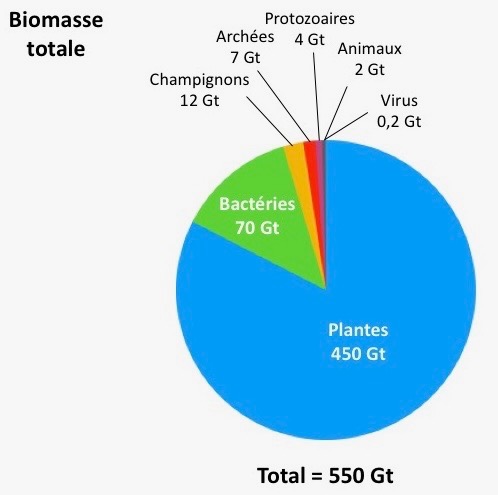
Rappelons d’abord qu’il ne faut pas confondre biodiversité et biomasse. La biodiversité est le nombre d’espèces, la biomasse est le poids de ces espèces dans les écosystèmes. Des articles précédents traitent déjà de la biodiversité (ici et ici). Nous allons nous pencher ici sur la biomasse et les résultats obtenus par Yinon Bar-On (Figure 1). Nous voyons que les organismes qui dominent la biosphère en terme de biomasse sont (1) les plantes (450 Gt), (2) les bactéries (70 Gt) et (3) les champignons (Fungi, 12 Gt). Une gigatonne (Gt) correspond à un milliard de tonnes (109 t). Ensemble, ces trois groupes représentent donc 532 Gt, c’est-à-dire plus de 96,7% de la biomasse vivante totale (Figure 1).

Figure 1. Biomasse totale de la biosphère, en gigatonnes (Gt). Bar-On et al. (2018).

Pour mettre en avant l’importance de ce chiffre de 550 Gt nous devons le comparer aux autres réservoirs de carbone connus de la planète. Nous sommes par exemple dans le même ordre de grandeur lorsque l’on considère l’atmosphère et ses 829 Gt de carbone (chiffre du GIEC, rapport AR5). Par contre les océans contiennent 38 700 Gt de carbone (chiffre du GIEC, rapport AR5), essentiellement sous forme de HCO3–, une valeur 70 fois plus élevée que la biomasse vivante totale. Quant aux sols, ils contiendraient de 1 500 à  2400 Gt de carbone.

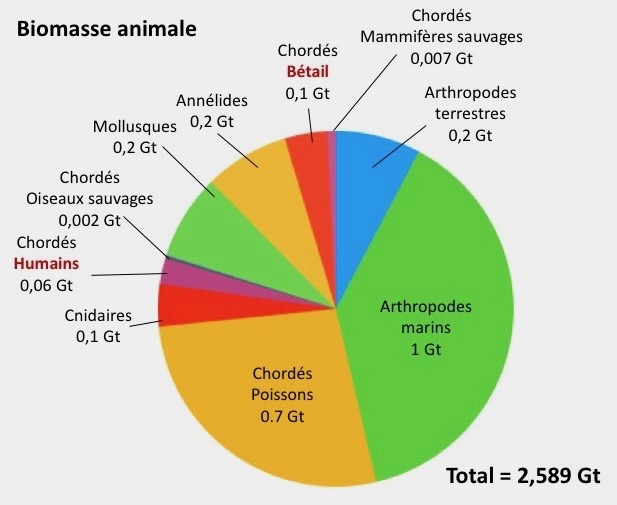
Les animaux ne représentent donc qu’environ 2 Gt de carbone (0,3% du total). Le chiffre exact obtenu par les auteurs de l’étude est 2,589 Gt de carbone. La distribution des animaux au sein de ces 2 Gt de carbone est détaillée à la Figure 2. Les animaux qui représentent la plus grande biomasse sont : les arthropodes marins (i.e., crabes, crevettes, copépodes, etc.; 1 Gt), les poissons (0,7 Gt), les arthropodes terrestres (i.e., insectes, araignées, etc.; 0,2 Gt), les annélides (i.e., vers de terre, polychètes, etc.; 0,2 Gt) et les mollusques (0,2 Gt).

Figure 2. Détail de la biomasse animale (Bar-On et al. 2018).

En regardant bien la Figure 2 nous voyons que les humains (environ 7 milliards d’individus) ne représentent que 0,06 Gt de carbone de la biosphère. Les humains ne représentent donc quasi rien en biomasse à l’échelle de la planète. Cependant, les animaux d’élevage, utilisés comme nourriture pour ces humains, représentent 0,1 Gt de carbone. Sur la planète, la biomasse du bétail est donc presque deux fois supérieure à celle des êtres humains.

Mais le plus étonnant est ceci : la Figure 2 nous dit que la biomasse du bétail (0,1 Gt) est plus de 14 fois supérieure à la biomasse des mammifères sauvages (0,007 Gt). Les animaux les plus nombreux de la planète ne sont donc pas les animaux sauvages, mais ce sont les vaches, les buffles, les porcs, les moutons, les chèvres, les chevaux, les ânes, les mulets et les chameaux. Au total 0,1 Gt. Le calcul complet de Bar-On est disponible ici.

2. Une hypothèse déroutante

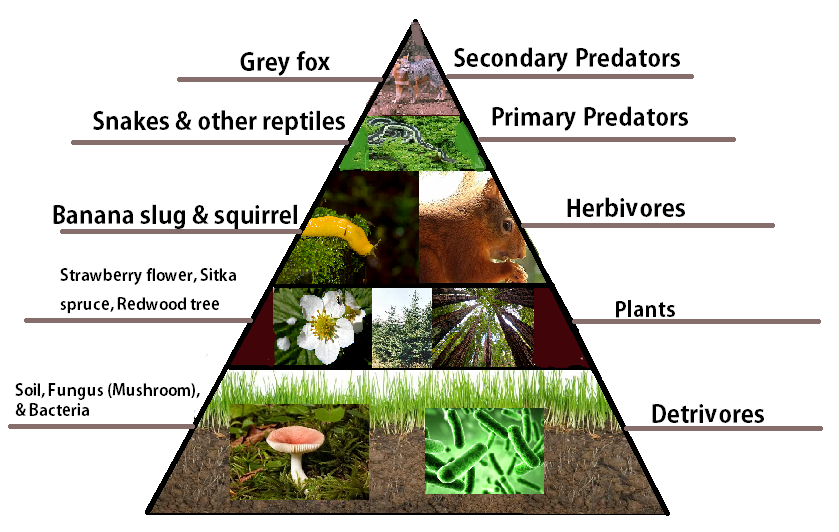
Puisque les 1,7 millions d’espèces animales (incluant les humains) ne représentent que 0,3% du carbone de la biosphère, nous pourrions imaginer un cataclysme les éliminant entièrement. Il resterait alors 99,7% de la biomasse, avec des plantes, des bactéries, des champignons des archées et des protozoaires. Que deviendrait la planète? Nous pouvons penser qu’elle se porterait à merveille ! En effet, tous les métabolismes seraient encore représentés (autotrophie, hétérotrophie) et les niches écologiques laissées vacantes par la disparition de l’homme et des animaux seraient colonisées par les organismes restants, c’est-à-dire essentiellement des végétaux, des bactéries, des champignons et des protozoaires qui se comporteront comme des opportunistes. La vie sur Terre se poursuivrait, et peut être même que de nouveaux animaux pluricellulaires apparaîtraient progressivement. Les plantes qui avaient besoin des insectes pour la pollinisation seront très probablement remplacées par des plantes qui n’en ont pas besoin. La vie sur Terre continuerait car les animaux ne sont qu’au sommet de la pyramide qui représente les niveaux trophiques (Figure 3). Le cas inverse, où l’on éliminerait les plantes et les bactéries de la surface de la planète est complètement différent. Dans ce cas, la vie entière disparaîtrait car on élimine la base de la pyramide (Figure 3).

Figure 3. Les divers niveaux trophiques de la biosphère : les producteurs primaires et les décomposeurs sont en bas de la pyramide (plantes et bactéries). Leur biomasse est élevée. Les consommateurs primaires (animaux herbivores), secondaires et tertiaires (animaux carnivores) sont en haut de la pyramide et leur biomasse est faible.

Bien qu’un tel cataclysme soit improbable, cet exemple extrême nous enseigne ce point crucial : la disparition d’une seule espèce animale est une chose bien triste, mais c’est seulement triste pour l’être humain. Au niveau écologique, la disparition d’une seule espèce animale n’affecte pas la vie sur Terre, ni même le cycle du carbone. La niche écologique laissée vacante est rapidement colonisée par d’autres organismes et de nouvelles espèces peuvent même apparaître par sélection naturelle. Il existe un équilibre permanent entre biotope (le milieu) et biocénose (les organismes). Après un déséquilibre, la biocénose s’adapte toujours au nouveau biotope. Voici quelques preuves : la vie sur Terre ne s’est pas arrêtée avec la disparition des dinosaures, du dodo de l’île Maurice ou du tigre de Tasmanie. Et les conséquences sur le cycle du carbone ont été quasi nulles, puisque qu’au total les animaux ne représentent que 0,3% du carbone de la biosphère.

3. Les incertitudes

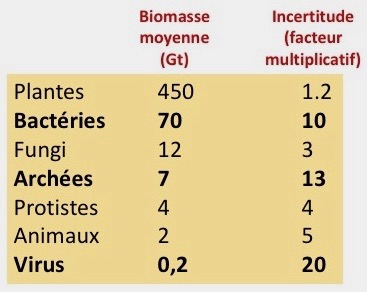
Déterminer la biomasse totale de la biosphère n’est pas une science exacte et les auteurs de l’étude nous donnent une marge d’erreur pour chaque groupe (Figure 4). Cette marge d’erreur nous est donnée sous forme d’un facteur multiplicatif pouvant être appliqué aux moyennes. On obtient ainsi une gamme de valeurs correspondant à un intervalle de confiance à 95%. Cette façon de procéder n’est pas habituelle, car généralement les moyennes sont données avec un écart-type (moyenne ± écart-type). Cependant, l’article est publié et nous ne pouvons plus rien y changer!

Figure 4. Biomasse moyenne et incertitudes selon Bar-On et al. (2018).

En analysant les résultats présentés à la Figure 4, nous voyons que la plus grande incertitude concerne les virus. Ils ne constituent qu’en moyenne 0,2 Gt de carbone, mais ce chiffre pourrait donc être multiplié par 20. On arriverait alors à 4 Gt de carbone viral, chiffre encore faible si l’on se réfère au total de 550 Gt.

Mais les conséquences de ces multiplications ne sont pas les mêmes pour les bactéries et les archées. Ces deux groupes sont caractérisés par de très grandes incertitudes sur les moyennes de biomasse : les facteurs multiplicatifs sont ici de 10 et de 13 (Figure 4). En d’autres mots, les auteurs nous proposent une moyenne de 70 Gt de bactéries pour la planète, mais peut-être que le chiffre réel est 10 fois plus élevé, et que l’on serait plutôt du côté de 700 Gt de carbone bactérien, soit beaucoup plus de carbone que les plantes et beaucoup plus de carbone que dans toute l’atmosphère!  Il en est de même pour les archées. En multipliant par 13 les 7 Gt d’archées estimés  (cf. facteur multiplicatif, Figue 3), on arrive à 91 Gt de carbone, un cinquième environ du carbone des plantes. Notons qu’une étude précédente (Whitman et al. 1998) [2] avait estimé que la biomasse des bactéries serait comprise  entre 350 et 550 Gt de carbone. Le chiffre de 70 Gt de carbone pour les bactéries est donc probablement bien en dessous de la réalité.

Dans la Figure 4 on voit que c’est pour les plantes pour qu’on estime le mieux la biomasse dans la biosphère. Le facteur d’incertitude est ici le plus petit (1,2). On est donc relativement certain du chiffre de 450 Gt.

4. Pourquoi de telles incertitudes?

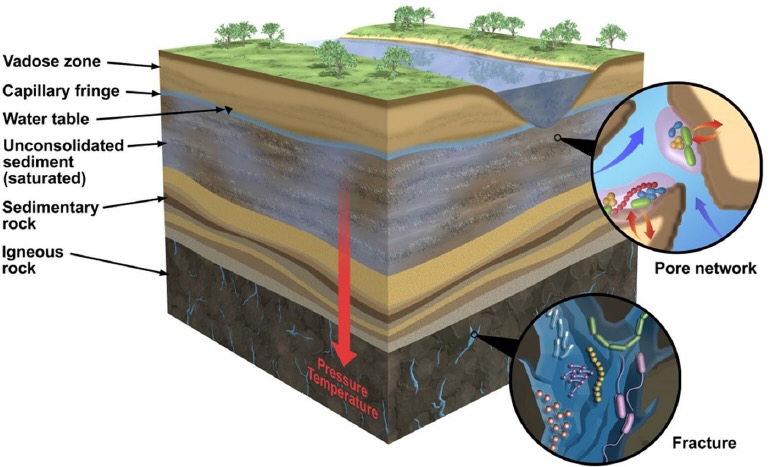
Les raisons de ces incertitudes sont liées à la taille des organismes. Les bactéries sont petites (de l’ordre de 1 micromètre) et estimer leur nombre dans 1 cm3 d’eau est relativement difficile, car les bactéries ont tendance à coller les unes aux autres. Même avec les meilleurs microscopes ou cytomètres en flux, on n’arrive pas à une bonne précision lorsque l’on compte les micro-organismes. Dans la terre c’est encore plus difficile car les bactéries se ‘cachent’ à l’intérieur ou entre des particules et y forment des biofilms. Et nous trouvons des bactéries vivantes jusqu’à 4 km de profondeur, dans une zone appelée la  subsurface (Figure 5). Les incertitudes sont ici énormes car la subsurface est très difficile à étudier. Pour les végétaux terrestres, estimer la biomasse est par contre beaucoup plus facile : les organismes sont seulement présents en surface, ils sont grands, visibles à l’oeil nu, et des réseaux de satellites peuvent être utilisés pour estimer la couverture végétale. Un verdissement récent de la planète a même été constaté (voir ici).

Figure 5. La subsurface est la zone de la planète qui comporte le plus de bactéries. Ces bactéries vivent dans les pores (surtout micropores) et les fractures des roches, et ce jusque 4 km de profondeur. A ce niveau, la température est telle (± 150°C) que la vie n’est plus possible.

5. Les conséquences des incertitudes

Les conséquences des incertitudes citées ci-dessus sont énormes. Nous savons estimer avec beaucoup de précision la biomasse des plantes, et nous pouvons donc estimer leur effet sur le cycle du carbone. Ces plantes pompent du CO2 atmosphérique et constituent donc une sortie pour le réservoir de carbone que représente l’atmosphère (voir l’article de JC Maurin en 4 parties : 1/4, 2/4, 3/4 et 4/4).

Mais comme nous ne savons pas estimer la biomasse des bactéries et des archées avec beaucoup de précision (70 Gt ? 500 Gt ? 700 Gt ?), et que ces bactéries et archées peuvent être autotrophes (fixer du CO2) ou hétérotrophes (consommer du CO2), nous n’avons aucune idée de leur effet sur le cycle du carbone global ! Les bactéries pourraient dominer en biomasse toutes les plantes de la planète et émettre ou fixer beaucoup de CO2. La fixation bactérienne du CO2 peut également se dérouler dans le noir absolu (bactéries chimio-autotrophes) comme c’était presque toujours la règle au Précambrien (Archéen et Protérozoïque inférieur). Nous le voyons, les conséquences sont potentiellement énormes. Tous les calculs concernant le cycle du carbone réalisés jusqu’à présent par le GIEC et d’autres auteurs sont très approximatifs car nous sommes incapables d’estimer la biomasse bactérienne avec suffisamment de précision, et ceci pour tous les écosystèmes de la planète.

6. Conclusions

  • La biomasse vivante représente 550 Gt de carbone, un chiffre comparable au carbone présent dans l’atmosphère (829 Gt de carbone selon le GIEC).
  • Ce sont les plantes qui dominent en biomasse (450 Gt de carbone).
  • Les animaux et l’homme ne représentent que 0,3% du carbone de la biomasse. Leur élimination complète n’éliminerait pas la vie sur Terre et n’influencerait pas grandement le cycle du carbone, tout comme la disparition de quelques espèces animales [3].
  • La biomasse du bétail (0,1 Gt) est plus de 14 fois supérieure à la biomasse des mammifères sauvages (0,007 Gt). Ceci est la conséquence de notre régime alimentaire : les humains sont essentiellement des carnivores !
  • Les incertitudes concernant la biomasse des bactéries et des archées est énorme. Les procaryotes (bactéries + archées) sont probablement les organismes dominants en termes de biomasse. Comme il est difficile d’estimer leur nombre, de grandes incertitudes planeront toujours sur les entrées et les sorties de carbone du stock que constitue l’atmosphère (cf. articles de JC Maurin ici). Quantifier avec précision la biomasse des procaryotes sur la planète est illusoire avec les technologies actuelles.

Références

[1] Bar-On YM, Phillips R, Milo R. The biomass distribution on Earth. Proc Natl Acad Sci U S A. 2018 Jun Influence du cycle du carbone 19;115(25):6506-6511. doi: 10.1073/pnas.1711842115. Epub 2018 May 21.

[2] Whitman WB, Coleman DC, Wiebe WJ (1998) Prokaryotes: the unseen majority. Proc. Natl. Acad. Sci. USA, Vol. 95, pp. 6578–6583.

[3] Les espèces animales sont cependant importantes pour l’homme et il est nécessaire de les préserver. Effectivement, elles lui fournissent de nombreux services : par exemple, les animaux constituent un pool de gènes dont l’étude nous apporte de nombreux renseignements sur le fonctionnement des cellules, sur l’apparition de la vie, et sur la théorie de l’évolution. De nombreux progrès sont faits en médecine grâce à l’étude de certaines espèces animales. Les animaux sont également utilisés par l’homme pour le transport, la chasse, la pêche et le divertissement (zoo, safaris, etc.). Mais au niveau écologique, la perte d’espèces animales n’est pas un phénomène relativement grave : les niches écologiques vacantes sont rapidement colonisées par d’autres espèces. Ceci est confirmé par les archives géologiques relatant les nombreux cataclysmes du passés.

Marché européen du carbone : stop ou encore

par Jean-Pierre Schaeken Willemaers
Institut Thomas More
Président du pôle Energie, Climat, Environnement

En cas de citation prière de mentionner Jean-Pierre Schaeken Willemaers « Marché européen du carbone: stop ou encore” »  http://www.science-climat-energie.be/2018/12/07/marche-europeen-du-carbone-stop-ou-encore/

Le système d’échange de quotas d’émission de l’UE, connu sous l’acronyme SEQE-EU ou en anglais  EU ETS, est un instrument utilisé pour réduire les émissions de Gaz à Effet de Serre (GES) ou de CO2 pour faire court.  Il repose sur un principe de plafonnement et d’échange des droits d’émission. Il a été adopté par la Commission Environnement du Parlement européen, le 13 octobre 2003. Continuer la lecture de Marché européen du carbone : stop ou encore →

Etendue de la glace arctique : actualisation novembre 2018

Le DMI (Danish Meteorological Institute) publie régulièrement l’évolution temporelle  mois par mois de l’étendue de la glace de l’Arctique. Le site SCE met en ligne les ‘updates’ concernant cette évolution depuis l’update d’octobre 2018 .

L’étendue de la glace arctique novembre 2018 est la plus grande depuis 2008  et aussi plus grande que 2006

Egalement se reporter à Connolly et al. 2017 pour l’évolution à plus long terme (depuis 1900).

‘Température moyenne globale’ pour novembre 2018

Le site SCE publie chaque mois l’ ‘update’ de la ‘température moyenne globale’ établie officiellement à partir des données satellitaires UAH. Les données de base et des informations complémentaires sont accessibles sur le site de Roy W. Spencer.

Peu de variation en novembre 2018

L’écart de température pour novembre 2018 est de 0,28°C, soit un écart un peu plus élevé que celui d’octobre 2018 (+0,06 °C). L’évolution de la température est de +0,13°C/décade de janvier 1979 à octobre 2018.


Evolutions récentes du CO2 atmosphérique (4/4)

par J.C. Maurin, Professeur agrégé de physique

En cas de citation prière de mentionner J.C. Maurin  « Evolutions récentes du CO2 atmosphérique (4/4)  » http://www.science-climat-energie.be/2018/12/02/__trashed-4/

Au XVIe siècle, dans une ultime tentative pour sauver le système de Ptolémée, on se résigna enfin à admettre la rotation des planètes autour du Soleil mais on conserva le dogme de la position centrale de la Terre par rapport au Soleil. Le dernier pas vers l’héliocentrisme dut finalement être franchi, à regret. Au XXIesiècle, Le GIEC adapte discrètement son Almageste : on lit dans la version de novembre 2018 du Résumé à l’intention des décideurs dès la première page, 1er encadré de l’introduction → « L’augmentation mondiale de la concentration en dioxyde de carbone est essentiellement due à l’utilisation des combustibles fossiles et aux changements d’affectation des terres ». Fin de cette première page → « La source principale de l’augmentation de la concentration du dioxyde de carbone dans l’atmosphère depuis l’époque préindustrielle provient de l’utilisation des combustibles fossiles ». La certitude absolue, naguère affichée, d’une origine 100% anthropique dans la hausse du CO2 atmosphérique disparaît donc. Un modèle mixte est désormais implicitement admis. A cinq siècles de distance, le dernier pas reste toujours difficile à franchir. Le présent article aide à trouver le chemin de Damas.

Continuer la lecture de Evolutions récentes du CO2 atmosphérique (4/4) →

Carottes de glace, CO2 et micro-organismes

par Prof. Dr Paul Berth

Les microbulles de gaz emprisonnées dans les carottes de glace sont fréquemment utilisées pour estimer le taux de CO2 de l’atmosphère du passé. Il s’agit de méthodes de mesure indirectes. Par exemple la carotte de glace EPICA Dome C en Antarctique nous suggère que le CO2 de l’atmosphère a varié entre 180 et 300 ppmv pendant les derniers 650 000 ans (Brook 2005). Cependant, le taux de CO2 observé dans ces carottes de glace représente-il vraiment l’atmosphère du passé? Nous allons montrer ici qu’un paramètre est souvent négligé par les glaciologues, et que ce paramètre pourrait avoir un effet considérable sur le résultat des analyses : il s’agit de la présence de micro-organismes dans la glace et les microbulles.

1. Des micro-organismes sont présents dans la neige et la glace

Commençons par rappeler que les micro-organismes (bactéries, archées et micro-eucaryotes) sont ubiquistes et bien présents dans la neige et la glace, aussi bien en Arctique qu’en Antarctique, et ce de la surface jusqu’à très grande profondeur (Miteva 2008). La littérature scientifique est très abondante à ce sujet (e.g., Skidmore et al., 2005; Nkem et al., 2006; Miteva et al., 2009; Zhang et al., 2009; Branda et al., 2010; Anesio and Laybourn-Parry, 2012; Price and Bay, 2012; Møller et al., 2013; Stibal et al., 2015; Zawierucha et al., 2015; Kaczmarek et al., 2016; Chen et al. 2016).

Les chercheurs Priscu et Christner (2004) ont calculé que le nombre total de bactéries pour les calottes glaciaires en Antarctique et au Groenland, atteint 9.61 x 1025 cellules, ce qui correspondrait à un stock de carbone de 2.65 x 10⁻³ Gt (1 Gt = 109 tonnes). Ces micro-organismes sont apportés par les vents, se déposent sur la neige et finissent par être emprisonnés dans la glace lors de la compaction de la neige. Ils peuvent donc se retrouver dans les microbulles analysées par les glaciologues. Notons qu’il n’y a pas que des micro-organismes qui sont emprisonnés : nous trouvons également des virus, des pollens, et de nombreuses particules minérales et organiques (fragments d’insectes, de plantes, etc.). La glace est donc loin d’être pure, ce qui explique d’ailleurs ses nombreuses couleurs.

Lorsque la glace est très claire c’est qu’elle contient peu de particules minérales. La densité des micro-organismes est alors faible, de l’ordre de 102 à 104 mL–1  (i.e., 100 à 10 000 cellules par millilitre ou centimètre cube de glace). Lorsque les particules minérales sont plus nombreuses la quantité de micro-organismes est plus élevée et peut atteindre 109 mL–1 (Tung et al. 2006). Il existe donc clairement un lien entre quantité de particules minérales et quantité de micro-organismes (Miteva 2008). Ceci n’est pas étonnant  car les particules minérales représentent  des sources de nutriments, particulièrement pour les micro-organismes autotrophes, c’est-à-dire ceux capables de fixer le CO2 atmosphérique.

2. Les micro-organismes de la glace sont fort diversifiés ainsi que leur métabolisme

Une étude récente, menée en Arctique et en Antarctique (Knowlton et al. 2013), nous montre que de nombreux groupes bactériens sont présents dans la neige et la glace, et ce jusqu’à de grandes profondeurs dans la glace. Notons par exemple la présence systématique de bactéries appartenant aux groupes Firmicutes et des Cyanobactéries.

La présence de Cyanobactéries est très importante à souligner : en effet, il s’agit de micro-organismes autotrophes, capables de fixer le CO2 gazeux pour le transformer en matière organique. En faisant cela elles produisent de l’O2. Par leur activité, ces Cyanobactéries peuvent donc modifier le taux de CO2 et d’O2 des microbulles de gaz emprisonnées dans les glaces. Ceci peut se faire lorsque la bulle de gaz vient de se fermer et que suffisamment de lumière pénètre encore dans la glace.

Quant aux Firmicutes, ces bactéries n’ont pas besoin de lumière et peuvent également fixer du CO2 (Vos et al. 2009). Les Firmicutes réalisent généralement de la fermentation de matière organique en anaérobiose (comme le genre Clostridium : de petites molécules organiques sont alors métabolisées et génèrent CO2 et H2). Les Firmicutes peuvent également présenter un métabolisme hétérotrophe classique, en générant du CO2 tout en consommant de l’O2 et de la matière organique. Mais notons que ces deux métabolismes, fermentation et hétérotrophie classique, requièrent de la matière organique et que celle-ci est peu abondante dans la neige et la glace. En effet, la glace est un milieu pauvre, que l’on caractérise d’oligotrophe (Maccario et al. 2015). Heureusement, les Firmicutes peuvent également vivre en complète absence de matière organique et de lumière, elles sont alors qualifiées de chimio-lithotrophes et réalisent dans ce cas la fixation du CO2 par la voie réductive de l’acétyl-CoA en employant un peu d’hydrogène (Erb 2011). Ce type de Firmicutes, fixant du CO2, est très abondant sur Terre, notamment dans les zones de subsurface (zone de la biosphère comprise entre 10 cm et 4 km de profondeur) (Magnabosco et al. 2016). Il n’y a donc pas que les Cyanobactéries qui sont capables d’abaisser le taux de CO2 des microbulles, il faut donc ajouter les Firmicutes chimio-lithotrophes.

En plus des Cyanobactéries et des Firmicutes notons la présence de Protéobactéries alpha, beta et gamma, trois groupes bactériens ubiquistes présentant des métabolismes variés et de nombreux genres chimio-lithotrophes capables de fixer du CO2 en absence de lumière (Knowlton et al. 2013). Ces bactéries sont détectées à toutes les profondeurs dans la glace. En plus de ces bactéries, des champignons microscopiques (Fungi) sont également présents.

3. Les micro-organismes de la glace sont actifs, même à très basse température

Il est connu depuis longtemps que de nombreux micro-organismes restent actifs en-dessous de 0°C. Par exemple, Planococcus halocryophilus croît et se développe parfaitement à la température de –15°C (Mykytczuk et al. 2013). Le record d’activité microbienne est assez bas et atteint –39°C (Panikov et al. 2006). Ces micro-organismes se développant dans le froid sont qualifiés de psychrophiles par les microbiologistes. Des psychrophiles sont présents dans tous les groupes de micro-organismes. Une synthèse de l’activité métabolique des psychrophiles à très basse température a été publiée récemment (Sengupta et Chattopadhyay, 2013). Les auteurs citent par exemple des expériences avec des molécules organiques marquées avec du 13C et placées dans de la glace qui montrent que ces molécules se retrouvent dans les bactéries vivant dans la glace. L’activité métabolique des psychrophiles à basse température, bien que faible, est indiscutable et a été maintes fois démontrée.

Voici brièvement les adaptations des psychrophiles. Il y a trois stratégies de résistance : (1) La fluidité de la membrane cytoplasmique est augmentée (synthèse d’acides gras insaturés par expression de désaturases); (2) Des molécules antigel sont accumlées dans le cytoplasme (solutés osmocompatibles, protéines anti-gel, protéines de liaison à la glace); (3) L’efficacité catalytique des protéines est maintenue, notamment par réduction des interactions hydrophobes internes (Maccario et al. 2015).

Les psychrophiles ont également des adaptations aux environnements hypersalés. En effet, lorsque de l’eau congèle les sels sont exclus de la glace et se retrouvent dans des poches ou des films d’eau (dans les microbulles) où l’eau reste liquide (Maccario et al. 2015). Les poches d’eau hypersalée (« brine » en anglais) présentent des diamètres jusqu’à quelques centaines de micromètres. Selon le type d’eau qui a congelé, eau douce ou eau de mer, la salinité de ces zones d’eau liquide dans la glace peut varier de 30 à 230 ppt (part per thousand, ou ‰) (Maccario et al. 2015). Il n’est donc pas étonnant de constater que les micro-organismes de la neige et de la glace possèdent également diverses adaptations à la vie sous une pression osmotique élevée. Par exemple, ces organismes synthétisent et accumulent des composés osmocompatibles comme la glycine, la bétaine, la choline, la sarcosine, ou le glutamate (Simon et al 2009). Les micro-organismes ont également une grande proportion de protéines membranaires acides, ce qui évite leur précipitation en présence de grandes concentrations en sels (Saum et al. 2013).

Nous voyons donc que de nombreux micro-organismes sont actifs et très bien adaptés à la vie à très basse température.

4. Les micro-organismes de la glace peuvent modifier l’atmosphère des microbulles

Ceci a été démontré in situ, en 2017 par l’équipe de Redeker (Redeker et al. 2017), à la fois pour l’Arctique et pour l’Antarctique. Cette étude ne concernait pas le taux de CO2 mais celui d’autres gaz pouvant être enfermés dans les bulles (les halogénures de méthyle). L’étude démontre clairement que des micro-organismes sont actifs in situ et peuvent modifier la composition des microbulles de gaz dans la neige et la glace. Si c’est le cas pour les micro-organismes capables de traiter les halogénures de méthyle, pourquoi ne serait-ce pas le cas pour le CO2 des microbulles étant donné la présence de Cyanobactéries ainsi que d’autres bactéries chimio-lithotrophes?

5. Les études les plus citées concernant le taux de CO2 des microbulles dans la glace ne prennent jamais en considération les micro-organismes

Par exemple, les études suivantes, toutes très célèbres et focalisées sur les microbulles des carottes de glace, ne comportent pas le mot « Bacteria » dans le texte :

– Neftel et al. (1988) Nature 331:609–611.
– Fischer (1999) Science 283:1712–1714.
– Petit et al. (1999) Nature 399:429–436.
– Monnin et al. (2001) Science 291:112–114.
– Brook (2005) Science 310:1285
– Loulergue et al. (2007) Clim Past 3:527–540.
– Shakun et al. (2012) Nature 484:49–55.

En d’autres termes, ces études ne considèrent pas la possibilité que les taux de CO2 des microbulles puissent être affectés par les bactéries vivant dans la glace. Ceci pourrait être expliqué par le fait que la microbiologie des glaces est un domaine de recherche récent et que les glaciologues ne collaborent pas assez avec les microbiologistes.

6. En plus des micro-organismes, l’atmosphère des microbulles peut également être affectée par d’autres phénomènes

De nombreux problèmes peuvent survenir lors de la mesure des gaz emprisonnés dans les microbulles de la glace. Ces problèmes sont traités par Jaworowski (2007). Voir aussi ici. Les carottes groenlandaises sont par exemple impropres à la mesure des teneurs en CO2 atmosphérique lors des transitions climatiques (Delmas 1993). En effet, des modifications post-dépôt peuvent affecter la composition de la glace et de ses bulles d’air : par exemple, les carbonates contenus dans les poussières peuvent produire du CO2 en réagissant avec des espèces acides de l’atmosphère (H2SO4, HNO3). Ce CO2 produit (cf. l’équation générale ci-dessous) n’était donc pas présent à l’origine dans la microbulle et les résultats sont faussés :

2H+ + CaCO3   =  H2O + CO2 + Ca2+

Des réactions avec des composés organiques peuvent aussi entrer en jeu. L’Antarctique semble moins affecté par ces modifications post-dépôt (Monnin et al. 2001), aussi ce sont essentiellement les carottes antarctiques qui sont utilisées pour suivre l’évolution du CO2 atmosphérique lors des glaciations et déglaciations (outre le fait que les carottes groenlandaises ne fournissent pas d’enregistrements antérieurs à 120 000 ans du fait d’un fort taux d’accumulation).

7. Conclusions

– De nombreux micro-organismes (de 102 à 109 bactéries par cm3) sont présents dans les carottes de glace utilisées par les glaciologues pour estimer le taux de CO2 de l’atmosphère du passé, mais les glaciologues n’en tiennent jamais compte. Les glaciologues considèrent que la glace est stérile;

– Les micro-organismes présents dans la glace sont cependant actifs et bien adaptés aux très basses températures. Ils se développent dans des poches et des films d’eau liquide hypersalée, où la température peut descendre plus bas que –20°C et restent même actifs jusque –39°C;

– Les micro-organismes de la glace sont capables de modifier l’atmosphère des microbulles emprisonnées. Ceci a été clairement démontré pour certains gaz (halogénures de méthyle);

– Les micro-organismes de la glace sont surtout représentés par des Cyanobactéries et des Firmicutes qui possédent tout l’arsenal génétique permettant de faire chuter le taux de CO2 des microbulles. Ces micro-organismes y ont tout intérêt, car c’est quasi la seule source de carbone disponible dans ce milieu fermé fortement oligotrophe. Cette fixation de CO2 peut se dérouler en l’absence de lumière pour les bactéries chimio-lithotrophes. En d’autres mots, des micro-organismes ont pu faire baisser le taux de CO2 des microbulles emprisonnées dans la glace, et ce dès l’instant de leur formation;

– Les taux de CO2 du passé renseignés par les carottes de glace sont donc potentiellement biaisés et pourraient même être assez loin de la réalité. Nous pouvons en conclure que les données de CO2 atmosphérique fournies par les carottes de glace doivent être interprétées avec beaucoup de précaution ;

– Il est urgent de réaliser des études de terrain ou des microbulles sont étudiées dès leur formation, et d’analyser systématiquement leur contenu microbien. Le couplage de la microbiologie de la glace environnante et des données atmosphériques locales (CO2 et température) devrait en effet être mieux contraint.

8. Références

Anesio A.M., Laybourn-Parry J. (2012). Glaciers and ice sheets as a biome. Trends Ecol Evol 27:219–225.

Branda E., Turchetti B., Diolaiuti G., Pecci M., Smiraglia C., Buzzini P. (2010). Yeast and yeast-like diversity in the southernmost glacier of Europe (Calderone Glacier, Apennines, Italy). FEMS Microbiol Ecol 72:354–369.

Brook EJ (2005) Tiny bubbles tell all. Science 310:1285–1287.

Chen Y, Li XK, Si J, Wu GJ, Tian LD, Xiang SR (2016) Changes of the bacterial abundance and communities in shallow ice cores from Dunde and Muztagata glaciers, Western China. Front Microbiol. 2016 Nov 1;7:1716.

Delmas RJ (1993) A natural artefact in Greenland ice-core CO2 measurements. Tellus B, 45:391–396.

Erb TJ (2011) Carboxylases in Natural and Synthetic Microbial Pathways. Appl Environ Microbiol 77:8466–8477.

Jaworowski Z (2007) CO2 : the greatest scientific scandal of our time. 21st CENTURY Science & Technology, Spring/Summer 2007, 14–28.

Kaczmarek Ł, Jakubowska N., Celewicz-Gołdyn S., Zawierucha K. (2016). Cryoconite holes microorganisms (algae, Archaea, bacteria, cyanobacteria, fungi, and Protista) – a review. Polar Rec 52:176–203.

Knowlton C, Veerapaneni R, D’Elia T, Rogers SO (2013) Microbial analyses of ancient ice core sections from greenland and antarctica. Biology (Basel) 2(1):206-32.

Maccario L, Sanguino L, Vogel TM, Larose C (2015) Snow and ice ecosystems: not so extreme. Res Microbiol 166:782–795.

Magnabosco C, Ryan K, Lau MC, Kuloyo O, Sherwood Lollar B, Kieft TL, van Heerden E, Onstott TC (2016) A metagenomic window into the 2-km-deep terrestrial subsurface aquifer revealed multiple pathways of organic matter decomposition. FEMS Microbiol Ecol 94(10).

Miteva V (2008) Bacteria in snow and glaciers ice. In : R. Margesin et al. (eds.) Psychrophiles: from Biodiversity to Biotechnology. Springer-Verlag Berlin Heidelberg, 2008.

Miteva V., Teacher C., Sowers T., Brenchley J. (2009). Comparison of the microbial diversity at different depths of the GISP2 Greenland ice core in relationship to deposition climates. Environ Microbiol 11:640–656.

Møller A.K., Søborg D.A., Al-Soud W.A., Sørensen S.J., Kroer N. (2013). Bacterial community structure in High-Arctic snow and freshwater as revealed by pyrosequencing of 16S rRNA genes and cultivation. Polar Res 32:17390.

Monnin E, Indermühle A, Dällenbach A, Flückiger J, Stauffer B, Stocker TF, Raynaud D, Barnola JM (2001) Atmospheric CO2 concentrations over the last glacial termination. Science 291:112–114.

Mykytczuk NC, Foote SJ, Omelon CR, Southam G, Greer CW, Whyte LG (2013) Bacterial growth at -15 °C; molecular insights from the permafrost bacterium Planococcus halocryophilus Or1. ISME J 7(6):1211-26.

Nkem J., Wall D., Virginia R., Barrett J.E., Broos E., Porazinska D., et al. (2006). Wind dispersal of soil invertebrates in the Mc Murdo Dry Valleys, Antarctica. Polar Biol 29:346–352.

Panikov NS, Flanagan PW, Oechel WC, Mastepanov MA, Christensen TR (2006) Microbial activity in soils frozen to below −39 °C. Soil Biol Biochem 38:785–794.

Price P.B., Bay R.C.(2012). Marine bacteria in deep Arctic and Antarctic ice cores: a proxy for evolution in oceans over 300 million generations. Biogeosciences 9:799–3815.

Priscu J.C., Christner BC (2004) Earth’s icy biosphere, pp. 130-145, In : Microbial Diversity and Bioprospecting, A. Bull (editor). Chap 13. ASM Press, Washington, D.C.

Redeker KR, Chong JPJ, Aguion A, Hodson A, Pearce DA (2017) Microbial metabolism directly affects trace gases in (sub) polar snowpacks. J R Soc Interface. 2017 Dec;14(137). doi: 10.1098/rsif.2017.0729.

Saum SH, Pfeiffer F, Palm P, Rampp M, Schuster SC, Mu¨ ller V, et al. Chloride and organic osmolytes: a hybrid strategy to cope with elevated salinities by the moderately halophilic, chloride-dependent bacterium Halobacillus halophilus. Environ Microbiol 15:1619–33.

Sengupta D, Chattopadhyay MK (2013) Metabolism in bacteria at low temperature: A recent report. J Biosci 38:409–412.

Simon C, Wiezer A, Strittmatter AW, Daniel R. Phylogenetic diversity and metabolic potential revealed in a glacier ice metagenome. Appl Environ Microbiol 75:7519–26.

Skidmore M., Anderson S.P., Sharp M.J., Foght J.M., Lanoil, B.D. (2005). Comparison of microbial community composition in two subglacial environments reveals a possible role for microbes in chemical weathering processes. Appl Environ Microbiol 71:6986–6997.

Stibal M., Gözdereliler E., Cameron K.A., Box J.E., Stevens I.T., Gokul J.K., et al. (2015). Microbial abundance in surface ice on the Greenland Ice Sheet. Front Microbiol 6:225.

Tung HC, Price PB, Bramall NE, Vrdoljak G (2006) Microorganisms metabolizing on clay grains in 3 km deep Greenland basal ice. Astrobiology 6:69–86.

Vos P et al. (2009) Bergey’s Manual of Systematic Bacteriology. Volume 3: The Firmicutes.

Zawierucha K., Kolicka M., Takeuchi N., Kaczmarek Ł.( 2015). What animals can live in cryoconite holes? A faunal review. J Zool 295:159–169.

Zhang X.-J., Ma X., Wang N., Yao T. (2009).New subgroups of Bacteroidetes and diverse microorganisms in Tibetan plateau glacial ice provide a biological record of environmental conditions. FEMS Microbiol Ecol 67:21–29.

Réflexions sur « Carottes de glace, CO2 et micro-organismes » :

• Ferdinand Engelbeen 23 novembre 2018 à 0 h 28 min

Cher professeur Berth,

Une protestation et une remarque/question sur votre aperçu des bactéries dans les carottes de glace…

Une protestation: s’il vous plaît, laissez Dr. Jaworoski reposer en paix, avec ses idées sur le CO2 dans les carottes de glace. Il a effectué de nombreuses recherches sur les radionucléides dans la glace après les retombées de la catastrophe de Tchernobyl, mais n’a jamais effectué de travail sur le CO2 dans la glace. Et beaucoup de ses remarques étaient fausses, même opposant des lois physiques …
Ses remarques de 1992 ont été entièrement réfutées par les travaux d’Etheridge e.a. de 1996 sur trois carottes de glace Law Dome.
Voir: http://www.ferdinand-engelbeen.be/klimaat/jaworowski.html

Une remarque / question. Pour autant que je comprenne d’un autre travail:
http://www.pnas.org/content/pnas/101/13/4631.full.pdf
Ce qui est plus ancien, mais donne un bon aperçu, certaines bactéries peuvent survivre pendant des centaines de milliers d’années même à -40°C, mais en général, c’est la survie par consommation d’énergie minimale, limitée à la réparation de l’ADN, pas de croissance. Voir le point K par la carotte de glace de Vostok, à la page 4635 des l’œuvre ci-dessus.
Le CO2 peut avoir été utilisé comme source de carbone et l’oxydation du NH4 présent près des inclusions de poussière en N2O peut avoir été la source d’énergie. Même si tout le N2O présent était produit par cette voie, cela représente une « réduction » de CO2 de 0,5 ppmv. Pas un gros problème …
Alors ma question: existe-t-il des mesures quantitatives ou des estimations qualitatives de la quantité modifié à la composition de l’air ancien dans les bulles?

Par ailleurs, les glaces du Groenland ne conviennent pas aux mesures de CO2 en raison de l’inclusion fréquente de poussières très acides venant des volcans islandais voisins, qui produisent du CO2 in situ avec des dépôts de poussières de carbonate provenant de la mer.

• Paul Berth 23 novembre 2018 à 17 h 07 min

Cher Dr Engelbeen,

Je vous remercie pour vos remarques pertinentes.

Concernant Jaworoski, je laisse le soin aux lecteurs de juger par eux mêmes en lisant les travaux d’Etheridge et al. (1996) que vous mentionnez ainsi que les commentaires sur votre blog.

Concernant la microbiologie des carottes de glace il y a plusieurs choses à dire :

– L’article dans PNAS que vous mentionnez (Price & Sowers 1994) est remarquable et nous apporte une preuve supplémentaire que l’atmosphère des microbulles de gaz peut être modifiée : le point K de l’article que vous mentionnez, à la page 4635, nous dit que des bactéries nitrifiantes (transformant le NH4+ en NO2– en présence d’O2, avec parfois une production de N2O) sont présentes dans les microbulles et affectent l’atmosphère ce ces microbulles. C’est exactement ce que je veux dire dans mon article. Comme ces bactéries nitrifiantes sont chimio-lithotrophes, elles peuvent donc fixer du CO2 et faire baisser le taux de CO2 de la bulle. Mais de combien? Là est toute la question! Remarquons que les bactéries nitrifiantes ne sont pas les seules dans la bulle… il y a toutes les autres.

– Je ne comprends pas bien comment vous obtenez le chiffre de 0.5 ppmv lorsque vous écrivez « Même si tout le N2O présent était produit par cette voie, cela représente une “réduction” de CO2 de 0,5 ppmv. » Pouvez-vous nous donner plus d’informations? N’oubliez pas que les bactéries nitrifiantes ne sont pas les seules, il y a aussi les Firmicutes, les Cyanobactéries, les Protéobactéries alpha, beta, gamma, etc…

– Pour répondre à votre question : je pense qu’il n’y a pas encore d’études quantitatives et que l’on connait encore peu de choses concernant l’effet des bactéries sur l’air des microbulles. Il serait très intéressant de réaliser une étude de type « shotgun metagenomics » sur des tranches de glace et en même temps quantifier les bactéries et le CO2 dans les bulles. On pourrait ainsi voir si les gènes impliqués dans les processus de fixation du CO2 sont présents. On pourrait aussi réaliser des expériences de laboratoire ou de la neige est compactée pour que des microbulles se forment, en présence et en absence de bactéries chimio-lithotrophes. Quelques recherches (passionnantes) devraient encore être menées pour éclaircir ce point concernant l’effet des communautés bactériennes sur les microbulles.

• Ferdinand Engelbeen 23 novembre 2018 à 23 h 21 min

Cher professeur Berth,

Le paragraphe K du travail que j’ai mentionné montre une réduction de 25: 1 du CO2 en tant que source de carbone par rapport à une augmentation de N2O:
« D’après les mesures effectuées au lac Bonney (49), ainsi que les calculs (50), nous avons utilisé un rapport (C fixé) / (N2O produit) d’environ 0,04 pour convertir le taux de nitrification en taux de métabolisme du carbone. »
Ils estiment un maximum de 10% de tout le N2O produit par cette filière. Les quantités de N2O trouvées dans les bulle de la carotte de glace de Vostok (et du Dôme C) atteignent environ 300 ppbv
(voir: http://cdiac.ess-dive.lbl.gov/ice_core_no.html).
Avec 10% de N2O produit et un facteur 25: 1 pour CO2 / N2O, cela signifie une élimination d’environ 0,75 ppmv de CO2. Désolé, je me suis rappelé à tort qu’il s’agissait d’une production à 100% de N2O …

Cela concerne le pic de contamination bactérienne au niveau des dépôts de poussière au maximum, ce qui correspond principalement aux périodes les plus froides pour les glaces continentales (globalement moins de pluie et plus de vent, apportant plus de poussière à l’intérieur des terres antarctiques).

La contamination bactérienne et par la poussière devrait être au moins d’un ordre de grandeur plus élevé sur les sites côtiers et comme la température de la glace est beaucoup plus élevée dans les sites côtiers (Law Dome: -20ºC; Vostok et Dome C: -40ºC), les bactéries devraient être beaucoup plus actives. sur les sites côtiers. Malgré ces énormes différences de poussière, de bactéries et de température, la différence de niveaux de CO2, de CH4 et de N2O dans différents carottes de glace est faible pour le même âge moyen des gaz. Pour le CO2, tous les noyaux de glace se trouvent à moins de 5 ppmv les uns des autres à des niveaux compris entre 180 et 310 ppmv au cours de périodes se chevauchant, voir:
http://www.ferdinand-engelbeen.be/klimaat/klim_img/antarctic_cores_010kyr.jpg

Quoi qu’il en soit fascinant de voir que certains extrémophiles peuvent survivre à des températures aussi basses, même plus de cent mille ans …

• Paul Berth 24 novembre 2018 à 13 h 44 min

Cher Dr Engelbeen,

Merci pour les précisions concernant le calcul. Je vous accorde qu’avec de tels chiffres la réduction du taux de CO2 ne sera que minime. Mais attention, ceci ne s’applique qu’aux bactéries nitrifiantes. Comme je vous le disais, il y a aussi d’autres bactéries capables de fixer du CO2 dans les microbulles.

Je trouve par contre beaucoup plus convaincant votre argument concernant les grandes différences de poussières et de température entre deux carottes éloignées, l’une près des côtes l’autre plus à l’intérieur du continent, alors que les niveaux de CO2, de CH4 et de N2O sont les mêmes. Si les quantités et types de bactéries diffèrent significativement pour la même tranche (même âge) de glace, on aurait alors la démonstration que les micro-organismes n’ont que peu d’effets sur les taux de CO2. Je serais donc curieux d’examiner les données des comptages bactériens qui ont été réalisés pour ces carottes. Y a t’il une publication? Le plus convaincant serait un comptage ou l’on estime le rapport bactéries mortes/vivantes, avec par exemple de l’iodure de propidium.

• Ferdinand Engelbeen 25 novembre 2018 à 17 h 51 min

Cher professeur Berth,

J’ai trouvé une recherche intéressante sur les bactéries dans les carottes de glace, qui montre la meilleure façon de préserver la vie par temps froid, où l’on a généralement plus de poussière, mais où l’on trouve plus de bactéries viables, où ce qu’il y a moins de poussière, donc conditions de froid avec transport des bactéries avec le vapeur d’eau/nuages/neige:
https://www.ncbi.nlm.nih.gov/pmc/articles/PMC4009855/

Pour les inclusions de poussière, les carottes de glace côtière présentent des niveaux plus élevés pendant les périodes chaudes
Leur composition est à peu près la même que pour les carottes continentales (principalement la Patagonie) en périodes froides. Pendant les périodes chaudes, plus de poussière locale est incluse, éventuellement aussi plus de bactéries locales résistantes au froid.

Toujours pas trouvés une lien direct entre la poussière, la température, la bio-vie et les niveaux de CO2 / CH4 /…

Note: Je n’ai pas de doctorat, mais un B.Sc. en ingénierie de processus. Retraité, toujours avec un grand intérêt pour tout ce qui est technique et scientifique, y compris le climat …

• Paul Berth 26 novembre 2018 à 15 h 59 min

Cher Mr Engelbeen,

Encore merci pour votre intérêt.

L’étude que vous mentionnez (Knowlton et al. 2013) est citée dans mon article (voyez la liste de références). Comme vous avez pu le voir, il s’agit d’une des rares recherches effectuées sur la microbiologie des carottes de glace et dans laquelle des carottes différentes sont comparées. Malheureusement ici, les trois carottes comparées sont éloignées les unes des autres et seulement deux sont comparées par les auteurs, l’une en Antarctique (Bird) et l’autre en Arctique (GISP2). Afin de juger de l’effet éventuel des communautés microbiennes sur le taux de CO2 des microbulles il aurait fallu comparer trois carottes proches dans la même région, en Antarctique par exemple.

Il aurait aussi fallu réaliser des comptages totaux (comptages DAPI par exemple) pour évaluer la biomasse bactérienne totale, et aussi des comptages de bactéries mortes/vivantes. Ceci n’a pas été réalisé par Knowlton et al. 2013… Il s’agit simplement d’une étude par microscopie, par culture sur boite de Petri et par séquençage d’ADN (méthodes qualitatives et non quantitatives). On ne sait donc rien dire quant à l’effet de ces micro-organismes sur les taux de CO2, on peut juste dire que des Firmicutes et Cyanobactéries sont présentes, sans pouvoir rien quantifier. Les auteurs pourraient cependant quantifier et utilisant la PCR quantitative, mais ne l’ont pas fait. De plus, les auteurs n’ont pas mesuré eux-mêmes les taux de CO2.

En d’autres mots, la corrélation (ou non corrélation) entre activité microbienne et taux de CO2 des microbulles doit encore être établie. Des recherches passionantes à venir! En attendant, une petite indication est déjà fournie par la phrase de l’abstract : « The highest numbers of isolates (i.e., sur boite de Petri) were found in ice core sections that were deposited during times of low atmospheric CO2 ». Une grande variété de microbes (donc de nombreux microbes capables d’utiliser le CO2) est retrouvée dans les bulles contenant le moins de CO2… Mais cela pourrait être un hasard, car la méthode utilisée n’est pas quantitative! Et comme vous dites, les taux de croissance sont très bas. Mais si vous voulez mon avis, il faudrait quand même s’en assurer! Il ne reste plus qu’à obtenir des crédits de recherche…

• Louis Baret 5 décembre 2018 à 16 h 22 min

Le délai entre la constitution de la glace et sa fermeture aux apports de CO2 est-il le même que celui avec les apports nitrés ? Seule la quantité de CO2 absorbé après fermeture aux échanges extérieurs est évaluable en fonction des variations de concentration en N2O. Autrement dit, les variations de N2O mettent peut-être juste en évidence le fait que le CO2 est un facteur limitant à l’activité des micro-organismes autotrophes en milieu oligotrophe. Et donc que l’enregistrement des microbulles témoigne du rapport entre capacité de fixation des organismes, biomasse, richesse nutritionnelle du milieu, vitesse de sédimentation et évolution de la température du substrat…
Autrement dit, en posant l’hypothèse carbone=réchauffement, les prélèvements montrent un réchauffement causé par la teneur en CO2, et ils montrent l’opposé en posant l’hypothèse carbone=refroidissement.

En ce qui me concerne, l’hypothèse carbone est indécidable sur la base glaciaire.

Le taux de CO2 des microbulles est globalement stable alors que les dépôts de glace et teneurs atmosphériques fluctuent énormément : une grosse amplitude de concentrations est-elle susceptible de fausser les dépôts par un effet de transfert/saturation relative ?

• Paul Berth 5 décembre 2018 à 23 h 04 min

Lorsque la microbulle se ferme la concentration de plusieurs gaz peut théoriquement varier suite à l’activité de divers micro-organismes : fixation de CO2 (autotrophes), production de CO2 (hétérotrophes), consommation d’O2, génération d’O2, production de divers gaz azotés (N2O, NO, N2) par les bactéries dénitrifiantes, fixation du N2, consommation de méthane (bactéries méthanotrophes), etc… Tout dépend des espèces présentes, de la présence de lumière, de leur activité métabolique et de la concentration en nutriments (certains métaux sont indispensables pour le bon fonctionnement de certaines voies métaboliques).

Comme vous le dites, les variables à considérer sont nombreuses : taux initial de CO2 dans la bulle, capacité de fixation des organismes, biomasse, richesse nutritionnelle du milieu, évolution de la température du substrat… mais aussi étanchéité de la microbulle, dépôts minéraux, etc.

Bref, des études supplémentaires sont nécessaires pour éclaircir certains points. La science n’est pas dite pour les carottes de glace!

• Nicolas Carras 11 février 2023 à 19 h 26 min

Merci beaucoup pour cet article et pour les commentaires que je garde dans ma doc. Passionnant et très instructif.

Evolutions récentes du CO2 atmosphérique (3/4)

par J.C. Maurin, Professeur agrégé de physique

En cas de citation prière de mentionner J.C. Maurin  « Evolutions récentes du CO2 atmosphérique (3/4) » http://www.science-climat-energie.be/2018/11/12/evolutions-recentes-du-co2-atmospherique-3-4/

L’IPCC (GIEC en français) fut créé en 1988 par l’UNEP (United Nations Environment Programme) et le WMO (World Meteorological Organization). Dans les principes régissant les travaux du GIEC (1) on lit : Le GIEC a pour mission d’évaluer … les risques liés au changement climatique d’origine humaine.  Le GIEC respecte son propre principe fondateur : il attribue l’intégralité de la hausse du taux de CO2 depuis 1958 à une cause anthropique. Nous examinerons ici le modèle anthropique du GIEC et nous le confronterons aux mesures contemporaines, puis à un modèle mixte. Cet article fait suite aux deux précédents publiés sur le site SCE au cours des mois de septembre (1/4) et octobre 2018 (2/4).

Continuer la lecture de Evolutions récentes du CO2 atmosphérique (3/4) →

Biodiversité, le vrai, le faux et l’incertain

Prof. Dr. Paul Berth

Le 30 octobre 2018 sortait le dernier rapport du WWF[1] concernant l’état de la biodiversité (voir ici). Les données obtenues sont très préoccupantes. De nombreux médias ont bien entendu présenté ce rapport de façon très alarmiste en exagérant certains points. Le but du présent article est de remettre les pendules à l’heure, en démêlant le vrai du faux et en présentant certaines incertitudes.

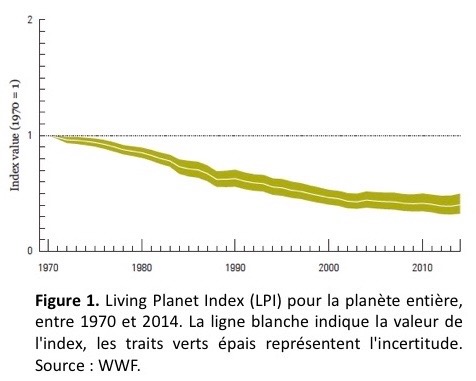
1. Que dit exactement le rapport du WWF? Le rapport du WWF nous dit que globalement, entre 1970 et 2014, l’index LPI (Living Planet Index) a chuté de 60% (Figure 1). Il n’est pas question ici de mettre en doute les résultats obtenus par le WWF mais simplement de les mettre en perspective. L’index LPI est calculé en tenant compte du nombre d’individus pour plusieurs espèces. Au total, ce sont 4 005 espèces qui ont été considérées, réparties en 16 704 populations (il peut donc y avoir plusieurs populations pour une même espèce). Ces populations proviennent de tous les continents. Pour toutes les espèces prises en compte le nombre d’individus a été estimé, puis des sommes ont été établies.

Remarquons que déterminer le nombre d’individus pour une espèce est loin d’être une science exacte. Si cela peut paraître simple pour de gros animaux comme des éléphants, c’est tout de suite beaucoup plus compliqué pour des poissons nageant en eau trouble, des amphibiens se cachant sous des feuilles ou des souris nocturnes qui s’échappent au moindre bruit. On emploie alors la technique de «capture-marquage-recapture» qui ne donne qu’une estimation de la population. Il est important que cela soit toujours la même méthode de capture qui soit utilisée et que l’effort d’échantillonnage soit toujours le même, sinon les résultats ne veulent rien dire. Il est dommage que le WWF ne donne pas plus d’informations concernant les méthodes employées dans son rapport.

2. Le rapport du WWF ne concerne donc que 4 005 espèces vertébrés (poissons, amphibiens, reptiles, oiseaux et mammifères). Les vertébrés choisis dans la liste sont bien entendu les plus gros et les plus connus du grand public (girafes, rhinocéros, singes, lions, baleines, dauphins, etc.). Le chiffre de 4 005 espèces peut paraître élevé, mais il faut savoir que selon la liste établie par le Catalogue of Life au 31 juillet 2018, un total de 1 750 666 espèces ont été décrites, et parmi celles-ci nous trouvons 66 813 vertébrés. Le rapport du WWF ne concerne donc que 6% des vertébrés et donc seulement 0.22% des espèces décrites. Bien entendu, si 6% des vertébrés vont mal, peut-être que les espèces non prises en compte vont mal également… Cependant, nous n’en savons rien… Y a t’il d’autres études?

Oui, il existe d’autres études. Par exemple, une étude de 2014 publiée dans Science (Dornelas et al.). Cette étude a considéré 35 613 espèces (donc 8 fois plus que le nombre d’espèces considérées par le WWF) mais ces espèces n’étaient pas que des vertébrés : la liste comportait de nombreux invertébrés ainsi que des plantes. Cette étude a également utilisé 14 indices de biodiversité différents (et pas seulement le LPI). Il a déjà été question de cette étude dans un article précédent (voir ici). Le résultat majeur de cette étude est simplement qu’il n’y a pas de chute globale de la biodiversité. Les auteurs constatent cependant des changements nets dans les populations (espèces remplacées par d’autres).

Nous voyons donc que tout dépend (1) des taxa considérés (vertébrés, plantes, etc.), (2) du nombre d’espèces choisies, et (3) de la surface analysée (région, pays, continent, Terre entière). On peut presque dire n’importe quoi, il suffit de bien composer son échantillon d’espèces… A l’échelle d’une région nous pouvons constater un net déclin, surtout si notre liste comporte des gros mammifères. Mais la situation ne sera pas forcément la même à une plus grande échelle, surtout si notre liste comporte des plantes, des champignons, et des invertébrés.

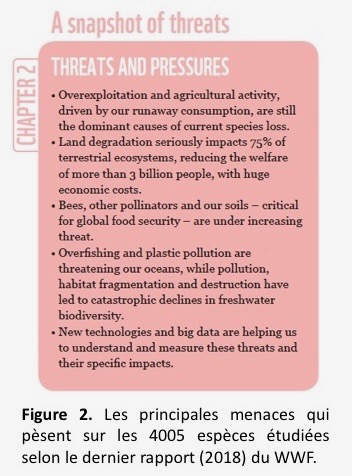
3. Quelles sont les menaces? De nombreux médias ne se sont pas gênés pour expliquer la perte de 60% de la biomasse des vertébrés en évoquant le réchauffement climatique, en insinuant bien entendu que l’homme en est responsable. Cependant, si vous lisez bien le rapport du WWF vous verrez que si le réchauffement est bel et bien évoqué, les auteurs insistent bien sur le fait que ce sont essentiellement la surexploitation des écosystèmes (chasse, surpêche, déforestation, etc.) et l’agriculture qui sont les causes dominantes des pertes observées. Avec bien entendu la pollution et la fragmentation des habitats. Dans le résumé à la page 11 du rapport, le réchauffement climatique global n’est même pas mentionné ! (Figure 2).

4. Conclusions

– Les 4 005 espèces de vertébrés étudiées par le WWF (rapport de 2018) représentent 6% du nombre total de vertébrés et n’ont pas encore disparu mais leurs populations ont été réduites de 60% entre 1970 et 2014. Ceci est évidemment très préoccupant et il faut à tout prix essayer de freiner cette diminution. Le WWF donne des pistes dans son rapport.

– Aucun déclin n’est constaté si l’on se focalise sur d’autres groupes, comme l’atteste une récente étude dans Science (Dornelas et al., 2014). Ces espèces dont la biodiversité n’est pas affectée représentent la majorité des espèces.

– Les trois causes principales du déclin observé sont la surexploitation des écosystèmes, l’agriculture, et la pollution. Le changement climatique global n’intervenant quasi pas. Ceci n’est pas étonnant : si l’on prend l’exemple des zones tempérées, en une seule journée la température peut varier de 20°C entre le matin et le soir (par exemple au mois d’août). Toutes les espèces sont habituées à ces écarts. Alors que dire de +0.8°C en 138 ans… ou des 2°C de plus prévus par les modèles informatiques pour l’an 2100… Ne pensez-vous pas que les espèces animales et végétales résisteront ? Et celles qui ne résistent pas seront bien entendu remplacées par d’autres selon le mécanisme de la sélection naturelle. C’est également ce que montre de manière très claire l’enregistrement géologique depuis plusieurs centaines de millions d’années.

Références

[1] WWF. 2018. Living Planet Report – 2018: Aiming Higher. Grooten, M. and Almond, R.E.A.(Eds). WWF, Gland, Switzerland.

‘Température moyenne globale’ pour octobre 2018

Le site SCE publie chaque mois l’ ‘update’ de la ‘température moyenne  globale’  établie officiellement à partir des données satellitaires UAH. Les données de base et des informations complémentaires sont accessibles sur le site  de Roy W. Spencer.

Peu de variation en octobre 2018

L’écart de température pour octobre 2018 est de 0,22°C, soit un écart  un peu plus élevé que celui de septembre 2018 (+0,14 °C). L’évolution de  la température  est  de +0,13°C/décade de janvier 1979 à octobre 2018.


Une Pensée Unique pour Jacques Duran

Prof. Dr. Paul Berth

Le physicien Jacques Duran, fondateur du célèbre site Pensée Unique et pionnier du climato-réalisme en France, est décédé ce vendredi 26 octobre 2018.

Son site internet n’est plus online mais vous pouvez le retrouver en utilisant les archives d’internet (utilisez le Wayback Machine, faites une recherche avec www.pensee-unique.fr et sélectionnez ensuite octobre 2018 pour avoir la dernière version du site de Jacques Duran). Si vous ne le connaissez pas, allez vite le voir (attention, actuellement (2023) l’adresse www.pensee-unique.fr a été reprise par quelqu’un d’autre qui y publie autre-chose). Copiez le site de Jacques Duran et diffusez le. Il est vraiment Unique! Il est abondamment documenté et illustré, et représente une véritable mine de connaissances sur le climat. Son site, créé en 2006 sous le pseudonyme de Jean Martin, est dédié à tous ceux qui ont conservé un esprit critique et qui se refusent à absorber sans réfléchir une grande partie des nouvelles de toutes sortes qui nous parviennent chaque jour.

Jacques Duran n’était pas n’importe quel blogeur… Ce physicien était DR1, Directeur de Recherche de première classe du CNRS en retraite depuis 2004, ancien Directeur des Etudes (1996-2003, puis Honoraire) de l’Ecole Supérieure de Physique et Chimie de Paris (ESPCI), auprès de Pierre-Gilles de Gennes (prix Nobel de physique de 1991). Il était aussi ancien Vice-Président, Chargé de la Recherche, de l’Université Pierre et Marie Curie (1986-1992).

Il a été successivement Directeur de deux laboratoires associés au CNRS (de 1981 à 1994) : l’URA 800 (Laboratoire d’Optique de la Matière Condensée) puis de l’UMR 800 (Laboratoire d’Acoustique et d’Optique de la Matière Condensée qui résultait de la fusion de l’OMC avec l’ancien Laboratoire d’ultrasons URA 799), à Jussieu. Il a enseigné, pendant plusieurs années, au sein du DEA de Physique des Liquides (Paris VI, ENS, Polytechnique, ESPCI) les fondements de la physique des poudres et des matériaux granulaires. Il a été referee officiel d’une douzaine de revues internationales dont (surtout) Physical Review Letters, Physical Review B, ainsi que du New Journal of Physics (IOP), Journal de Physique (Fr), ainsi qu’expert à la NASA. Il fut interviewé de nombreuses fois à la radio (France Inter (Denis Cheissoux : « CO2 mon amour » !), France Culture (Stéphane Deligeorges), France Info (Marie-Odile Monchicourt), RFI, Europe 1, Radio Canada (Chantal Srivastava), etc., et à la télévision (Arte, FR3, Archimède, chaîne météo…).

Il y a une chose que Jacques Duran ne supportait pas : c’est que la Science soit détournée à des fins partisanes, ni même qu’elle soit détournée tout court. Et surtout que l’on cache un débat en instaurant la Pensée Unique… Voici un petit extrait de son site, par lequel il incitait le lecteur à la discussion :

« Alors, cher(e) lecteur(trice), devenez un spectateur critique des informations dont vous êtes submergé. Aiguisez votre sens contestataire à l’égard de toute “Pensée Unique”. A la grande différence des médias et des politiques, ce site est fait pour vous faire réagir. Vous disposez des liens nécessaires pour m’écrire (poliment, SVP). Car c’est bien là, le mérite d’Internet et des blogs, par rapport aux autres médias : On n’avale plus rien sans discuter. Même pas le contenu de ce site. »

C’est suivant cette ligne libre-exaministe que notre site SCE, récemment créé (juin 2018) veut inscrire sa démarche. Comme pour Jacques Duran,  nous estimons que le consensus n’a pas de place en Science …

Pas d’erreurs pour l’Arctique!

par Prof. Dr. Paul Berth

Comme mentionné dans un article précédent, le DMI (Danish Meteorological Institute) publie régulièrement l’évolution temporelle, mois par mois, de l’étendue de la glace de l’Arctique en millions de km2. Le dernier graphique publié (Fig. 1) nous montre l’étendue de la glace au mois de septembre entre 1979 et 2018 (c’est au mois de septembre que l’étendue de glace arctique est la plus faible, moins de 10 millions de km2). Une droite, dont la pente est négative, est tracée parmi les points : tous les 10 ans, la surface semble diminuer de 11,4%. Si l’on extrapole la droite ont peut calculer qu’il n’y aura plus de glace en Arctique dans 60 ans. Cependant, ne remarquez-vous rien d’étrange sur ce graphique?

Et bien oui, il y a quelque-chose d’étrange : il n’y a pas de barres d’erreur pour chacun des points! Consultons maintenant le rapport du GIEC sur la cryosphère [1]. Ce rapport nous donne à la page 326 un graphique comportant des barres d’erreur (Figure 2).

Nous voyons par exemple que sur la figure du GIEC (Figure 2a), la mesure de 7,5 106 km2 de septembre 1989 est accompagnée d’une barre d’erreur valant ± 1 million de km2. Sur le graphique ci-dessous (Figure 3), des barres d’erreur de 1 million de km2 ont donc été rajoutées sur le graphique du DMI, et ce pour les 10 dernières années. Bien entendu ceci est approximatif, mais comme les vraies barres d’erreur ne sont pas disponibles il faut bien en placer soi-même pour se faire une idée de ce qu’il se passe.

Nous pouvons ainsi voir sur la Figure 3, qu’à part une valeur qui semble significativement plus basse en 2013, la surface de la glace atteinte en septembre ces 10 dernières années est relativement stable. Il est clair que la surface des glaces était plus grande en 1980, mais concernant les 10 dernières années il n’y a probablement aucune différence significative entre les valeurs observées pour la période 2008–2018 (excepté 2013). Il faudrait bien entendu placer les véritables barres d’erreur sur le graphique et réaliser une étude statistique rigoureuse… Les puristes pourront toujours réclamer auprès du DMI.

Pourquoi la mesure est-elle si peu précise? 1 million de kilomètres carrés c’est quand-même grand… Par exemple, c’est plus ou moins la surface de l’Egypte (Figure 4), le chiffre exact étant 1 001 450 km2. La France, ne fait que 643 801 km2, quant à la Belgique n’en parlons pas, elle fait à peine 30 528 km2. Pour la surface d’autres pays voir ici.

Pourquoi une si grande erreur? Pour le savoir, consultons les documents fournis par l’organisme chargé de collecter et de diffuser les données satellitaires (Eumetsat OSI SAF). Pas besoin d’être un spécialiste, ces documents sont très clairs :

« Known limitations of the reprocessed sea ice concentration products are listed in this section. All the aspects listed apply in large extent to the other existing Sea Ice Concentration datasets based on Passive Microwave Radiometer (PMR) measurements. Users of the OSI SAF and other similar data sets, should be fully aware of these so that not to bias their conclusions.[2]« 

Voici les principaux biais selon Eumetsat :

  • De la vraie glace peut être invisible pour les satellites, particulièrement dans les zones ou la concentration de la glace est faible. Ceci provient du traitement appliqué aux données pour enlever le bruit de fond dû aux nuages.
  • En été, la glace fond légèrement en surface (sur quelques cm) et le satellite détecte de l’eau, alors qu’il y a de la glace sous les quelques cm d’eau.
  • Lorsque la glace est trop fine (<30 cm) le satellite n’est pas performant et ne voit pas la glace.
  • De nombreuses données sont manquantes, dans l’espace et dans le temps. De l’interpolation spatiale et temporelle est donc réalisée afin de combler les lacunes.
  • La résolution spatiale est faible. En effet, selon le canal utilisé par le satellite (la fréquence micro-onde détectée par le radiomètre embarqué), la zone analysée et considérée comme un point peut être aussi grande que 148 km x 95 km (c’est la cas par exemple pour le détecteur micro-ondes de type SMMR sur NIMBUS-7). Ceci vient du fait que pour obtenir suffisamment de micro-ondes au détecteur il faut considérer une très grande surface, car la Terre émet très peu de micro-ondes. Vraiment très peu… Pour s’en rendre compte il suffit de visualiser la courbe de Planck pour 300 K avec SpectraCalc.com (en plaçant « upper limit » à 1000 microns, la ou commence le domaine micro-ondes).
  • Des problèmes de détection sont constatés à l’interface entre les côtes et la glace de mer. Dans ces zones, le satellite ne sait pas s’il s’agit de terres, de mer ou de glace. Et donc des erreurs sont commises.

Conclusions

– Sans barres d’erreurs, un graphique ne veut rien dire. Impossible de dire si la tendance observée est significative.

– Il est indéniable que la surface des glaces arctiques en septembre 1980 (± 8 millions de km2) était plus élevée qu’actuellement (± 6 millions de km2) et que c’est significatif. En effet, pas besoin de test statistique pour voir que 8 ± 1 est significativement plus grand que 6 ± 1.

– Les satellites ne sont pas très précis lorsqu’ils mesurent la surface des glaces. L’erreur sur la mesure vaut environ 1 million de km2, c’est-à-dire la surface de l’Egypte.

– Pour les 10 dernières années (2008–2018), étant donné l’erreur sur la mesure, les valeurs ne semblent pas significativement différentes les unes des autres, si ce n’est la valeur plus basse de 2013. Les réalistes y verront une stagnation alors que les optimistes y verront bien entendu une augmentation!

Références

[1] Vaughan, D.G., J.C. Comiso, I. Allison, J. Carrasco, G. Kaser, R. Kwok, P. Mote, T. Murray, F. Paul, J. Ren, E. Rignot, O. Solomina, K. Steffen and T. Zhang, 2013: Observations: Cryosphere. In: Climate Change 2013: The Physical Science Basis. Contribution of Working Group I to the Fifth Assessment Report of the Intergovernmental Panel on Climate Change [Stocker, T.F., D. Qin, G.-K. Plattner, M. Tignor, S.K. Allen, J. Boschung, A. Nauels, Y. Xia, V. Bex and P.M. Midgley (eds.)]. Cambridge University Press, Cambridge, United Kingdom and New York, NY, USA.

[2] Sørensen et al. 2017. Global Sea Ice Concentration Climate Data Record. Product User Manual. Product OSI-450. Document version: 1.0. Data set version: 2.0. DOI: 10.15770/EUM_SAF_OSI_0008. March 2017.

Les limites des lois de la physique dans la transition énergétique

par Alain Préat, Professeur émérite de l’Université Libre de Bruxelles

En cas de citation prière de mentionner  Alain Préat  « Les limites des lois de la physique dans la transition énergétique »  http://www.science-climat-energie.be/2018/10/17/les-limites-des-lois-de-la-physique-dans-la-transition-energetique/


1. Introduction
Bertrand Cassoret a récemment publié un excellent ouvrage [1] sur le sujet. Cet auteur est ingénieur et docteur en génie électrique et s’est lancé sans a priori dans le dédale des ‘promesses’ des énergies vertes en tentant de préciser ce qu’il en est à partir d’une quantification rigoureuse des rendements énergétiques réels. Pourquoi ‘réels’ ? Simplement parce qu’il faut débusquer tout ce qui n’est pas mis en avant (principalement pertes énergétiques cachées) et surtout mettre à plat les ordres de grandeurs du monde de l’énergie. Sa conclusion sera sans appel « même si l’efficacité énergétique est utile et même indispensable, elle ne sera pas suffisante… il est nécessaire de modifier l’usage que l’on fait des appareils consommateurs ». Autre conclusion sans appel « mon objectif n’est pas de critiquer les énergies renouvelables, ni les nécessaires mesures d’efficacité, mais plutôt de montrer qu’elles pèsent bien peu face à l’ampleur des problèmes ». Continuer la lecture de Les limites des lois de la physique dans la transition énergétique →

Etendue de la glace arctique : actualisation septembre 2018

Le DMI (Danish Meteorological Institute) publie régulièrement l’évolution temporelle  mois par mois de l’étendue de la glace de l’Arctique. Le site SCE va également mettre en ligne les ‘updates’ concernant cette évolution.

Les données du graphique DMI montrent que l’extension de la glace Arctique est la quatrième plus élevée depuis 2006 et la plus importante depuis 2014. Les données du graphique concernent les mois de septembre depuis 1978 (courbe rouge), la droite de pente négative donne la tendance de ce mois depuis 1978. Pour les autres mois, il faut consulter le site DMI et ‘cliquer’ sur le mois souhaité. Si on extrapole la droite dans le temps (vers la droite sur le graphique) on peut prévoir, si la tendance se maintient (on n’ a jamais que 40 ans de recul !), qu’il n’y aura plus de glace en Arctique dans soixante ans environ. Continuer la lecture de Etendue de la glace arctique : actualisation septembre 2018 →

‘Température moyenne globale’ pour septembre 2018


Le site SCE mettra chaque mois la mise au point  ou ‘update’ de la ‘température moyenne  globale’  établie officiellement à partir des données satellitaires UAH. Les données de base et des informations complémentaires sont accessibles sur le site  de Roy W. Spencer.

Le mois de septembre 2018 a été le mois de septembre le plus froid depuis 10 ans.

Evolutions récentes du CO2 atmosphérique (2/4)

par J.C. Maurin, Professeur agrégé de physique

En cas de citation prière de mentionner J.C. Maurin  « Evolutions récentes du CO2 atmosphérique (2/3) » http://www.science-climat-energie.be/2018/10/04/evolutions-recentes-du-co2-atmospherique-2-3/

Partie B : Corrélations CO2 versus « température »

Pour tenter de comprendre les évolutions récentes du CO2 on va s’intéresser aux corrélations existantes. Lorsque deux grandeurs A et B sont corrélées, on peut envisager une relation de cause à effet: soit A est la cause de B, soit B est la cause de A (suivant l’antériorité entre A et B). Toutefois il reste aussi possible qu’une autre grandeur C soit la cause à la fois de A et de B.  Pour le CO2 , il existe 3 corrélations, deux sont basées sur les mesures récentes, la troisième utilise des indicateurs indirects = proxies.

Continuer la lecture de Evolutions récentes du CO2 atmosphérique (2/4) →

Evolutions récentes du CO2 atmosphérique (1/4)

par J.C. Maurin, Professeur agrégé de physique

En cas de citation prière de mentionner J.C. Maurin  « Evolutions récentes du CO2 atmosphérique (1/3) »  http://www.science-climat-energie.be/wp-admin/post.php?post=3050&action=edit

Dans les années 80, la découverte dans les archives glaciaires d’une corrélation entre température et taux de CO2 permit de soupçonner une influence anthropique sur le climat: les taux mesurés depuis 1958 étaient supérieurs aux taux des archives glaciaires.

Continuer la lecture de Evolutions récentes du CO2 atmosphérique (1/4) →

Les coraux blanchissent depuis très longtemps

par Prof. Dr. Paul Berth

Le blanchissement des coraux est un phénomène dont on entend souvent parler dans les médias. Il s’agirait d’un grave problème environnemental, dont la fréquence augmente, et qui pourrait mener à la perte totale des récifs coralliens. Le réchauffement climatique global, qui serait causé par l’augmentation de la concentration atmosphérique en CO2 est, bien entendu, pointé du doigt. Cependant, le blanchissement des coraux n’est-il pas un phénomène très ancien? Est-il seulement causé par des variations de température? Quel recul avons-nous à ce sujet? Une récente publication de Nicholas Kamenos et Sebastian Hennige, deux chercheurs anglais des Universités de Glasgow et d’Édimbourg, apporte de nouveaux éléments[1].

Tout d’abord, rappelons que les coraux blanchissent lorsqu’ils expulsent leurs algues symbiotiques, organismes unicellulaires appelés zooxanthelles, et que ce phénomène fait suite à un stress de nature physique, chimique ou biologique. Pour les stress physiques il y a par exemple la température inadaptée[2] ou une lumière trop ou trop peu intense[3]. Au niveau chimique nous trouvons l’effet de certains xénobiotiques (par exemple des herbicides[4]), mais également un pH ou une salinité inadaptée. Quant aux stress biologiques il y a bien entendu les attaques virales et bactériennes[5].

Mais ce que les alarmistes ne disent pas c’est qu’une fois devenus blancs les coraux ne sont pas encore morts… Le blanchissement serait en fait un moyen pour une colonie de polypes de s’adapter rapidement à un environnement fluctuant[6]. Les biologistes qui ont compris cela ont appelé ce phénomène « le blanchissement adaptatif ». Après l’épisode de blanchissement, les coraux acquièrent de nouvelles zooxanthelles, mieux adaptées au nouvel environnement. Il est vrai que la plupart des polypes du corail meurent, mais ceux qui survivent sont désormais plus résistants. En quelques mois, voire quelques années après le blanchiment, le corail a complètement récupéré car les polypes résistants se sont multipliés. Comme mentionné dans un article précédent, la théorie du blanchissement adaptatif a été très récemment confirmée par une étude génétique réalisée en 2016.

Mais quel recul avons-nous au sujet du blanchissement des coraux? Il faut savoir qu’avant 1979, très peu de choses étaient connues au sujet de la fréquence de blanchissement. Ceci est facile à comprendre : pour pouvoir se déplacer sous l’eau et constater que les coraux blanchissent, il aura fallu attendre l’invention du scaphandre autonome et le développement de la plongée sous-marine libre de type SCUBA. Comme l’élaboration du prototype du premier détendeur moderne n’a été faite qu’en décembre 1942, lorsque le français Jacques-Yves Cousteau rencontra l’ingénieur Émile Gagnan, il n’est pas étonnant que notre recul concernant les épisodes de blanchissement des coraux n’est pas très grand.

Les deux chercheurs anglais mentionnés en début d’article ont donc essayé de voir si le phénomène de blanchissement pouvait être observé dans le passé. Pour cela ils ont réalisé des carottages dans des coraux massifs de type Porites spp (Figure 1) vivant au niveau de la Grande Barrière de corail en Australie.

Les coraux durs et massifs du genre Porites (Figure 1) sont trouvés dans les récifs du monde entier. Au moins 7 espèces dominantes de Porites ont été identifiées (P. lobata, P. solida, P. lutea, P. australiensis, P. mayeri, P. murrayensis, et P. anae) et il a été estimé que les plus vieux Porites ont au moins 700 ans[7]. En d’autres mots, ces coraux n’ont pas été éliminés par les nombreuses périodes du passé où la température ou la salinité ont varié. La vitesse de croissance de ces coraux peut être déterminée en examinant les anneaux de croissance annuels dans le squelette en employant des rayons X (Knutson et al. 1972)[8]. Il a ainsi été déterminé que ces coraux peuvent croître à une vitesse d’environ 10 mm par an. Les Porites sont donc des enregistreurs précis des environnements marins du passé, du moins pour la zone de surface des océans. Par exemple, la composition en isotopes de l’oxygène du squelette d’aragonite de ces coraux peut donner des informations sur la température de surface de l’eau de mer ainsi que sur sa composition isotopique, qui est ensuite utilisée pour reconstituer la température des océans du passé[9].

Pour quantifier la fréquence et la prévalence des évènements de blanchissement du passé en employant des carottes de Porites, Kamenos et Hennige ont analysé la vitesse d’extension linéaire de ce corail. En effet, lorsque le corail blanchit, son squelette carbonaté en garde la trace car le dépôt d’aragonite est ralentit. Mais il est important de se rappeler que de multiples facteurs peuvent influencer la vitesse d’extension linéaire, comme la baisse de salinité à l’embouchure d’un fleuve, la turbidité (tempêtes), les changements de concentration en nutriments, etc. Il est donc important de considérer plusieurs coraux de la même espèce à des endroits différents.

Les chercheurs ont analysé 44 carottes de corail et ont commencé par analyser le haut des carottes (la partie la plus récente). Pour cette partie haute, les stries de croissances ont d’abord été confrontées aux données de température de l’eau de mer (données ERSST fournies par la NOAA depuis 1854). Grâce à ces données de température de la NOAA, il est facile d’identifier les mois de l’année où la température locale moyenne était de 1°C supérieure à la moyenne habituelle. On sait que le blanchissement débute à ce moment. C’est ce qui est appelé une DHM ≥ 1°C (DHM, Degree Heating Month). Entre 1854 et 2001, c’est-à-dire la période couverte par les données ERSST, il y eut plusieurs DHM ≥ 1°C. Les chercheurs ont donc simplement mesuré la hauteur des stries du corail (i.e., la vitesse d’extension linéaire) au moment de ces épisodes DHM ≥ 1°C. Ils ont ainsi calibré leur outil.

Après cette calibration, les chercheurs ont regardé le bas des carottes de corail pour lesquelles aucune donnée de température ERSST n’était disponible, tout simplement parce que la NOAA n’existait pas avant 1854… Et ils virent que certaines stries de croissance avaient la même taille que celles se formant durant un épisode DHM ≥ 1°C. La procédure complète d’analyse est présentée en Figure 2.

En analysant les Porites massifs, Kamenos et Hennige sont ainsi remontés jusque 1620, un peu avant la Guerre de Trente Ans. C’est la première fois que l’on réussit à remonter si loin dans le temps. Bien entendu, pas de voitures et pas d’industrie pétrolière à cette époque, pas de pesticides et pas de surpêche, et donc si des épisodes de blanchissement sont détectés, ceux-ci doivent ipso facto être imputés à d’autres causes qu’à l’effet de l’homme. Rappelons qu’en 1620 les européens étaient à peine arrivés en Australie. Le Néerlandais Willem Jansz était le premier arrivé, en 1606. Son bateau, le Duyfken, jeta l’ancre devant cap York. Dans un récit postérieur, un Néerlandais décrit le territoire qu’il voit « comme non cultivé, et peuplé par de sauvages barbares noirs et cruels, qui ont massacré certains de nos marins »[10]. Les premiers explorateurs britanniques, William Dampier et James Cook, n’arrivent que plus tard entre 1688 et 1770.

Voici maintenant les résultats de Kamenos et Hennige : ils démontrent clairement que le blanchissement n’est pas un phénomène moderne. Les coraux blanchissaient en 1620 et la fréquence de blanchissement (le nombre d’années de blanchissement par décade) a même augmenté entre 1620 et 1753, pour ensuite diminuer de 1754 à 1820. A partie de 1820 jusque 2001, la fréquence augmente à nouveau, et ce à une vitesse comparable à la période croissante précédente (Figure 3).

Conclusions

  • Le blanchissement des coraux existait avant l’ère industrielle et est apparu déjà en 1620.
  • La fréquence de blanchissement peut augmenter ou diminuer en fonction du temps.
  • L’augmentation actuelle de la fréquence de blanchissement n’est pas exceptionnelle.
  • L’effet de l’homme sur la fréquence de blanchissement semble limité, du moins pour les coraux du genre Porites.

Références

[1] Kamenos NA and Hennige SJ (2018) Reconstructing Four Centuries of Temperature-Induced Coral Bleaching on the Great Barrier Reef. Front. Mar. Sci. 5:283. doi: 10.3389/fmars.2018.00283.

[2] Saxby T, Dennison WC, Hoegh-Guldberg O (2003). « Photosynthetic responses of the coral Montipora digitata to cold temperature stress ». Marine Ecology Progress Series. 248: 85–97.

[3] Hoegh-Guldberg O, Smith G (1989). « The effect of sudden changes in temperature, light and salinity on the population density and export of zooxanthellae from the reef corals Stylophora pistillata Esper and Seriatopora hystrix Dana ». Journal of Experimental Marine Biology and Ecology. 129 (3): 279–303.

[4] Jones RJ, Muller J, Haynes D, Schreiber U (2003). « Effects of herbicides diuron and atrazine on corals of the Great Barrier Reef, Australia ». Marine Ecology Progress Series. 251: 153–167.

[5] Kushmaro A, Rosenberg E, Fine M, Loya Y (1997). « Bleaching of the coral Oculina patagonica by Vibrio AK-1 ». Marine Ecology Progress Series. 147: 159–65.

[6] Graham NA, Jennings S, MacNeil MA, Mouillot D, Wilson SK (February 2015). « Predicting climate-driven regime shifts versus rebound potential in coral reefs ». Nature. 518 (7537): 94–7.

[7] Potts, D.C.; Done, T.J.; Isdale, P.J.; Fisk, D.A. (1985). « Dominance of a Coral Community in the Genus Porites Scleractinia ». Marine Ecology Progress Series. 23 (1): 79–84.

[8] Knutson, D. W., Buddemeier, R. W., and Smith, S. V. (1972). Coral chronometers: seasonal growth bands in reef corals. Science 177, 270–272. doi: 10.1126/science.177.4045.270.

[9] Thompson, D. M. « Comparison of observed and simulated tropical climate trends using a forward model of coral δ18O ». Geophysical Research Letters. 38.

[10] Flannery, Tim; The Explorers; Text Publishing; Melbourne; 1998.